
Типы рецепторов при передаче информации через мембрану
Передача (трансдукция) информации через клеточную мембрану
- G-белки и вторичные мессенджеры
- Роль мембранных фосфоинозитидов в передаче сигнала
- Метаболизм фосфоинозитидов и регуляция проницаемости мембран для ионов Сa
- Другие типы вторичных посредников
Типы рецепторов
Рецепторные белки делятся на два класса: глобулярные и мембранные. Первые представляют собой свободно плавающие в цитоплазме клетки высоко афинные к определенным типам молекул соединения. Появление лигандов для этих рецепторов в цитоплазме приводит к изменению свойств этих рецепторов и выполнению ими своих функций. Например, солюбилизированная протеинкиназа С, связывая ионы кальция, присоединяется к мембране и начинает атаковать мембранные субстраты. Другим примером такого способа управления является регуляция синтеза некоторых клеточных белков альдостероном – появляясь в крови, этот гидрофобный гормон легко проникает через клеточную мембрану, находит в цитоплазме свой рецептор и образует с ним комплекс, способный проникать в ядро. Так комплекс распадается и высвобождающийся рецептор служит фактором инициации экспрессии соответствующих генов. Другой пример передачи информации через мембрану – это интегральные белки, которые связывают сигнальные вещества на внешней стороне мембраны и за счет изменения своей конформации генерируют новый сигнал на внутренней стороне мембраны.
Рецептор, вне зависимости от природы связывающегося с ним эффектора, имеет общий план строения: участок, расположенный вне клетки, внутримембранный участок и участок, погруженный в цитоплазму. Внешний и внутренний участки рецептора являются вариабельными, его срединная часть – константной. N-конец рецептора (внешний) специфичен к внешнему сигналу, тогда как внутренний С-конец – к ассоциированному с рецептором внутриклеточному белку. Свойства последнего и определяет, с какой из внутриклеточных сигнальных систем будет осуществляться взаимодействие. В рассматриваемом случае сам сигнал, будь это химическое вещество, квант света, или даже механическое воздействие, обычно не проникает внутрь клетки, а преобразуется в результате модификации мембранных белков, которая приводит к образованию (высвобождению) молекул посредников – вторичных мессенджеров.
В общем виде передача сигнала через мембрану может быть сведена к трем основным стадиям:
- I – взаимодействие сигнальной молекулы с рецептором,
- II – конформационная перестройка рецепторной молекулы и изменение функции специализированных мембранных белков – посредников,
- III – образование «вторичных мессенджеров» – сравнительно небольших молекул (ионов), диффузия которых в клетке к определенным субклеточным структурам обеспечивает стремительное распространение сигнала.
Механизмы передачи информации в живых системах универсальны – все громадное разнообразие сигналов, полученное различными рецепторами, преобразуется по единому принципу за счет идентичности II и III стадий передачи информации через мембрану. Различают три типа рецепторов (рис. 64).
1. Рецепторы первого типа являются белками, имеющими одну трансмембранную полипептидную цепь. Это аллостерические ферменты, активный центр которых расположен на внутренней стороне мембраны. Многие из них являются тирозиновыми протеинкиназами. К этому типу принадлежат рецепторы инсулина, ростовых факторов и цитокинов. Связывание сигнального вещества ведет к димеризации рецептора. При этом происходит активация фермента и фосфорилирование остатков тирозина в ряде белков. В первую очередь фосфорилируется молекула рецептора (автофосфорилирование).
2. Ансамбли рецепторов с ионными каналами. Эти рецепторы являются олигомерными мембранными белками, образующими лиганд-активируемый ионный канал. Связывание лиганда ведет к открыванию канала для ионов Na + , K + или Сl — . По такому механизму осуществляется действие нейромедиаторов, таких, как ацетилхолин (никотиновые рецепторы: Na + — и К + -каналы) и γ-аминомасляная кислота (ГАМК А-рецептор, являющийся Сl — каналом). Ансамбли рецепторов с ионными каналами – это интегральные мембранные олигомерные белки, состоящие из нескольких субъединиц, полипептидная цепь которых неоднократно пересекает наружную клеточную мембрану. Кроме канальных структур они одновременно содержат белковые рецепторы, которые способны специфически связывать с внешней стороны мембраны лиганды, изменяющие ионную проводимость канала.

Рецепторы данного типа используют в качестве первичных сигналов некоторые нейротрансмиттеры, отвечающие за синаптическую передачу в электрически возбудимых клетках. Классические примеры такого рода – это катионные ацетилхолиновые рецепторы. Ионные каналы этих рецепторов могут находиться в трех основных состояниях: 1) закрытое состояние (в отсутствие внешнего сигнала); 2) активированное (открытое) состояние (первичный мессенджер связан с рецептором); 3) инактивированное (закрытое) состояние – может наступать, когда первичный мессенджер еще связан с рецептором.
3. Рецепторы третьего типа, сопряженные с ГТФ-связывающими белками (ГТФазами). Полипептидная цепь этих белков включает семь трансмембранных тяжей. Такие рецепторы передают сигнал с помощью ГТФ-связывающих белков на белки-эффекторы, расположенные на соседних участках мембраны или в цитоплазме. Функция этих белков заключается в тонкой модификации клеточного метаболизма. Таким образом, связывание сигнальной молекулы с мембранным рецептором влечет за собой какой-либо из трех видов внутриклеточного ответа, которые и будут рассмотрены ниже.
Рецепторы, ассоциированные с ферментативной активностью, по своей субъединичной структуре весьма разнообразны. Как правили, они представены мономерными белками, но могут легко объединяться в олигомерные мембранные ансамбли в зависимости от присутствия первичного мессенджера. Практически у всех этих рецепторов полипептидная цепь пересекает клеточную мембрану единственный раз. Общим у них является также то, что участок для восприятия первичного сигнала локализован на стороне, обращенной во внеклеточное пространство. По механизму взаимодействия с цитоплазматическими мишенями рецепторы данного типа разделяются на две группы.
Первая группа включает рецепторы-ферменты, с цитоплазматической стороны которых находится каталитический участок, активируемый при действии на рецептор внешнего сигнала (рис. 65). К ним относится обширное семейство рецепторных тирозиновых протеинкиназ, способных к аутофосфорилированию по тирозиновым остаткам, а также к фосфорилированию тирозиновые остатки других белков-мишеней. К этой же группе относятся рецепторы, обладающие протеинфосфатазной активностью, которые дефосфорилируют фосфотирозиновые остатки белков-мишеней. Как киназы, так и фосфатазы вовлекаются в регуляцию таких важнейших событий, как клеточное деление, дифференцировка, развитие иммунного ответа.
Вторая группа рассматриваемых рецепторов собственной ферментативной активностью не обладает. Однако в присутствии внешнего сигнала они приобретают способность связывать цитоплазматические (не рецепторные) протеинтирозинкиназы, которые в свободном состоянии неактивны, но в комплексе с рецептором активируются и фосфорилируют его. Включение фосфатных остатков в такой рецептор-«якорь» создает условия для связывания с ним других белков-мишеней, которые также фосфорилируются и тем самым передают сигнал. В эту группу входят рецепторы, участвующие в развитии иммунного ответа, а именно: рецепторы антигенов и рецепторы цитокинов, или интерлейкинов.
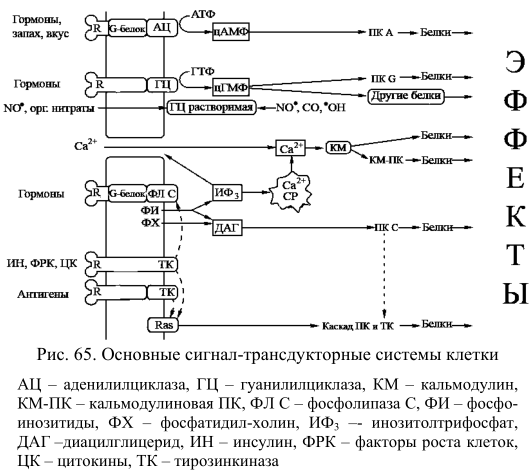
Ряд белков (эффекторов) осуществляет свои функции в результате фосфорилирования цАМФ-зависимыми протеинкиназами. Молекула протеинкиназы состоит из двух субъединиц: регуляторной и каталитической. цАМФ связывается с регуляторной субъединицей, что приводит к отделению каталитической субъединицы (она становится активной) и фосфорилированию соответствующего белка. Большое семейство протеинкиназ подразделяется на группы по механизму активации и по типу субстрата. ПК-А активируются цАМФ, ПК-G – цГМФ, ПК-С – диацилглицеролом, Са 2+ /кальмодулин-зависимые киназы – ионами кальция. Классификация по типу субстрата зависит от того, какая аминокислота фосфорилируется данным ферментом – известны тирозинкиназы и серин/треонинкиназы. Многие протеинкиназы являются растворимыми белками, другие относятся к мембранным белкам, имеющим трансмембранные домены или заякоренным на мембране с помощью жирных кислот.
G–БЕЛКИ И ВТОРИЧНЫЕ МЕССЕНЖЕРЫ
В настоящее время в основу классификации клеточных сигнальных систем положены вторичные мессенджеры и регулируемые ими клеточные реакции. Таким образом, к числу основных сигнальных систем относятся: циклоаденилатная; Са 2+ -фосфоинозитолтрисфосфат-зависимая; липоксигеназная; НАДФН-оксидазная (супероксид-синтазная); NO-синтазная. В последнее время особое внимание привлекает МАР-киназная система (Mitogen Aktivated Protein kinase), регулирующая клеточный цикл. В большинстве из них в качестве промежуточного звена вовлекаются так называемые G-белки.
Рецепторы, сопряженные с G-белками (G-protein coupled receptors, GPCR), передают сигнал от первичных мессенджеров к внутриклеточным мишеням с помощью цепи GPCR => G-белок => эффекторный белок (рис. 66). Первичными сигналами для этих рецепторов служат разнообразные молекулы, среди которых низкомолекулярные гормоны и нейромедиаторы (например, адреналин, норадреналин, ацетилхолин, серотонин, гистамин), опиоиды, гормоны пептидной и белковой природы (адренокортикотропин, соматостатин, вазопрессин, ангиотензин, гонадотропин, эпидермальный фактор роста), некоторые нейропептиды. В этот же ряд попадают множество химических сигналов, воспринимаемых обонятельными и вкусовыми сенсорными клетками, а также свет, рецептором для которого служит пигмент фоторецепторных клеток родопсин.
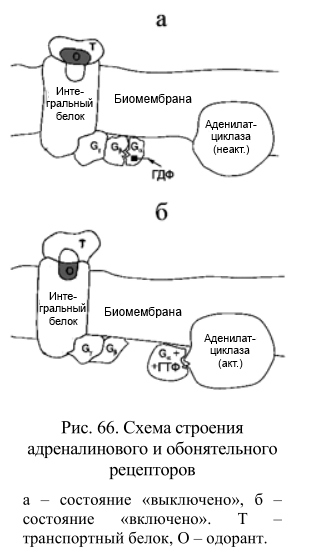
Один и тот же первичный сигнал может передавать информацию через несколько разных GPCR, так что если число внешних сигналов для GPCR составляет несколько десятков, то самих рецепторов известно более 200. Следующий за рецептором компонент сигнального каскада представлен G-белком. Идентифицировано около 20 различных G-белков, наиболее распространенные — Gs и Gi, которые соответственно стимулируют и ингибируют аденилатциклазу; G q , активирующий фосфолипазу С; G-белки сенсорных клеток: фоторецепторных – G t , (трансдуцин), обонятельных – G olf и вкусовых – G g . G-белки – это гетеротримеры, которые состоят из субъединиц трех типов: α, β и γ. В естественных условиях последние две субъединицы функционируют как единый βγ-комплекс.
Важнейшая характеристика G-белков – присутствие на их α-субъединице центра связывания гуаниловых нуклеотидов: ГДФ и ГТФ. Если с G-белком связан ГТФ, то это соответствует его активированному состоянию (другими словами, G-белок находится в положении «включено»). Если в нуклеотидсвязывающем центре присутствует ГДФ, это соответствует выключенному состоянию. Центральное событие при передаче сигнала от рецептора, на который подействовал первичный сигнал, к G-белку состоит в том, что активированный рецептор катализирует обмен ГДФ, связанного с G-белком, на присутствующий в среде ГТФ. Это событие, обозначаемое как ГДФ/ГТФобмен, сопровождается диссоциацией тримерной молекулы Gбелка на две функциональные субъединицы: α-субъединицу, содержащую ГТФ, и βγ-комплекс. Далее одна из этих функциональных субъединиц, какая именно – зависит от типа сигнальной системы, взаимодействует с эффекторным белком, представленным ферментом или катионным каналом. Как следствие, функциональная активность эффектора меняется, что, в свою очередь, приводит к изменению цитоплазматической обстановки и в конечном счете инициирует тот или иной клеточный ответ. Эффекторными белками в сигнальных системах типа GPCR => G-белок => эффекторный белок могут быть аденилатциклаза, катализирующая синтез цАМФ из АТФ; фосфолипаза С, гидролизующая фосфатидилинозитол с образованием ДАГ и IР3; фосфодиэстераза, расщепляющая цГМФ до ГМФ; некоторые типы калиевых и кальциевых каналов.
Весьма важно, что при передаче сигнала в каскаде рецептор => G-белок => эффекторный белок исходный внешний сигнал может многократно усиливаться. Это происходит благодаря тому, что одна молекула рецептора за время пребывания в активированном состоянии (R*) успевает перевести в активированную форму (G*) несколько молекул G-белка. Например, в зрительном каскаде родопсин => Gt => цГМФ-фосфодиэстераза на каждую молекулу R* может образоваться несколько сот или даже тысяч молекул G*, а это означает, что на первой стадии каскада R* => G* коэффициент усиления внешнего сигнала составляет 102 –103 . Хотя на следующей стадии каскада (G* => эффекторный белок) каждая молекула G* взаимодействует только с одной молекулой эффекторного белка, сигнал здесь также амплифицируется, поскольку на каждую молекулу G* и соответственно активированного эффекторного белка в цитоплазме появляется (исчезает) большое число молекул вторичного сигнала. Так, в зрительном каскаде на второй его стадии одна молекула активированной цГМФ-фосфодиэстеразы способна расщепить в секунду до 3 тыс. молекул цГМФ, служащего в фоторецепторных клетках вторичным мессенджером. Поскольку усиление внешнего сигнала на обеих стадиях суммируется, в конечном счете коэффициент амплификации сигнала при его прохождении через каскад может достигать весьма высоких значений: в зрительных клетках усиление составляет величину порядка 105 –106.
Ясно, что прекращение действия внешнего стимула должно сопровождаться «выключением» всех компонентов сигнальной системы. На уровне рецепторов это достигается, во-первых, в результате диссоциации первичного сигнала из комплекса с GPCR, во-вторых, путем фосфорилирования рецепторов под действием специальных протеинкиназ и последующего связывания с модифицированным рецептором специального белка (например, β-аррестина). G-белки обладают способностью гидролизовать связанный с ними ГТФ до ГДФ, что обеспечивает их инактивацию. И наконец, чтобы переход клетки к исходному (до действия внешнего стимула) состоянию завершился, специальные механизмы восстанавливают исходный уровень вторичного мессенджера или катиона в ее цитоплазме. Например, цАМФ, цитоплазматическая концентрация которого повышается при передаче сигнала в каскаде β-адренорецептор => Gs-белок => аденилатциклаза, гидролизуется затем цАМФ-фосфодиэстеразой до нециклического (линейного) AMФ, который свойствами вторичного мессенджера не обладает.
G-белки ответственны за трансмембранную передачу сигналов множества гормонов или нейромедиаторов к разнообразным мишеням клетки. Четыре G-белка к настоящему времени очищены до гомогенного состояния и биохимически охарактеризованы: Gt (трансдуцин), Gs, Gi и Go. Оказалось, что каждый из них имеет уникальные мишени (эффекторные белки). Gt активирует цГМФспецифичную фосфодиэстеразу в наружных сегментах палочек сетчатки; Gs и Gi, соответственно, стимулируют и ингибируют аденилатциклазу и присутствуют во всех клетках; Go представлен в большом количестве в клетках мозга и, по-видимому, ингибирует электрочувствительный Са 2+ -канал в нейронах.
Ряд существенных G-белков пока не очищен. Так, Gp, который использует в качестве мишени фосфатидилинозитолспецифичную фосфолипазу С, инициирует быстрый распад фосфатидилинозитола в плазматической мембране и образование нескольких вторичных посредников. Другой G-белок, Gk, по-видимому, открывает К + -специфичные каналы в сердечной мышце и других клетках; Ge-белки участвуют в регуляции экзоцитоза. В некоторых случаях один G-белок внутри клетки может реагировать на связывание лиганда с одним из нескольких разных рецепторов. Такая ситуация имеет место, например, для белка Gk из ганглионарных клеток Aplysia. Кроме того, G-белки могут иметь больше одной мишени. В качестве примера можно привести белок Gt, который активирует как цГМФ-фосфодиэстеразу, так и фосфолипазу А 2 в наружных сегментах палочек сетчатки быка. По-видимому, в этих процессах участвуют различные субъединицы Gt.
Все G-белки прочно связаны с плазматической мембраной, за исключением трансдуцина, который может диссоциировать от мембраны. Ни одна из субъединиц не является трансмембранным белком. Однако по меньшей мере в некоторых случаях γ-субъединица ацилирована и может присоединяться к мембране с помощью ковалентно связанной жирной кислоты. В качестве такого якоря для закрепления в мембране G-белков часто используется миристат. Наиболее распространенными мишенями G-белков являются аденилатциклаза (для Gs и Go) и фосфолипаза С, ответственная за гидролиз фосфатидилинозитола (для Gp). Модуляция аденилатциклазы приводит к изменению внутриклеточной концентрации цАМФ, который, как известно, влияет на множество внутриклеточных процессов. Одним из последствий увеличения содержания цАМФ является, например, стимуляция цАМФ-зависимой протеинкиназы (протеинкиназа А), которая в свою очередь фосфорилирует специфические белковые субстраты. Клетки содержат также два типа Са 2+ -зависимых протеинкиназ, активируемых, соответственно, Са 2+ +кальмодулином и Са 2+ +диацилглицеролом и фосфатидилсерином (протеинкиназа С). Активность обеих этих киназ регулируется вторичными посредниками, образующимися при обмене фосфатидилинозитола, которая во многих клетках инициируется путем G-белок зависимой активации специфической фосфолипазы С. Молекулярные машины, обеспечивающие передачу сигнала от рецепторов к внутриклеточным мишеням, состоят, как правило, из нескольких белковых компонентов, совокупность которых обычно именуют каскадом передачи сигнала или сигнальным каскадом.
Как мы видели, помимо белковых посредников в передачу сигнала внутри клетки вовлекаются относительно небольшие молекулы, служащие вторичными посредниками, или мессенджерами (от англ. messenger – посыльный). В содержание данного понятия вкладывается смысл «следующий по цепочке передачи сигнала», а не вторичность или меньшую значимость данного соединения. Для обозначения сигнальных молекул повсеместно используется термин «мессенджер», а не «посредник». Дело в том, что в цитоплазме в передачу сигнала вовлечены как разнообразные белки, так и малые молекулы, причем функционально все они являются посредниками между рецептором, на который подействовал внешний стимул, и клеточным ответом. Однако между ними есть и принципиальное различие: белки образуют своеобразную молекулярную машину, которая, с одной стороны, чувствует внешний сигнал, а с другой – обладает ферментативной или иной активностью, модулируемой этим сигналом, в то время как малые молекулы действительно служат посыльными (мессенджерами) между различными белками, полиферментными комплексами или даже клеточными структурами. Самый известный пример такого посыльного – это уже упоминавшийся выше цАМФ, среди других наиболее важных вторичных мессенджеров следует упомянуть циклический гуанозин-3′,5′-монофосфат (цГМФ), инозитол-1,4,5-трисфосфат (обозначаемый как ИФ 3 ), диацилглицерол (ДАГ), ион кальция.
Наиболее характерные свойства вторичного мессенджера, во-первых, его относительно небольшая по сравнению с биополимерами молекулярная масса (понятно, что посыльный должен с высокой скоростью диффундировать в цитоплазме), во-вторых, он обязан быстро (по сравнению со временем передачи сигнала) расщепляться (в случае Са 2+ – откачиваться). В противном случае сигнальная система останется во включенном состоянии и после того, как действие внешнего сигнала уже прекратилось. Подобные ошибки могут оказаться в прямом смысле фатальными. Так, например, форболовые эфиры, которые представляют собой структурные аналоги диацилглицерола, но в отличие от него в организме не расщепляемые, способствуют развитию злокачественных опухолей. Это происходит потому, что форболовые эфиры вовлекаются в работу некоторых сигнальных систем, которые регулируют клеточное деление с помощью диацилглицерола как вторичного мессенджера. Однако, имитируя действие диацилглицерола и обеспечивая передачу пролиферативного сигнала, они вовремя не расщепляются. В результате сигнальная система перестает чувствовать внешний сигнал и оказывается в перманентно включенном состоянии, а значит, пролиферация клеток перестает быть контролируемой.
РОЛЬ МЕМБРАННЫХ ФОСФОИНОЗИТИДОВ В ПЕРЕДАЧЕ СИГНАЛА
Для того, чтобы представить механизм действия фосфоинозитидов в качестве вторичных мессенджеров, необходимо более подробно рассмотреть цикл их метаболических превращений в мембране.

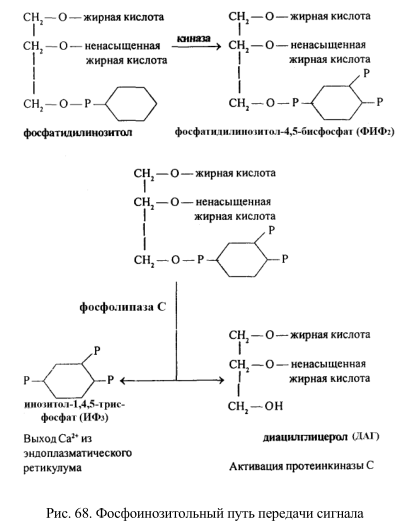
Внешний сигнал после взаимодействия с рецептором через Gбелок (рис. 67) активирует фосфодиэстеразу (фосфолипазу С), которая гидролизует фосфатидилинозитол-4,5-бисфосфат (ИФ2) с образованием диацилглицерола и инозитолтрифосфата (рис. 68). Диацилглицерол фосфорилируется диацилглицеролкиназой в фосфатидную кислоту (реакция требует присутствия АТФ). Фосфатидная кислота взаимодействует с цитидинтрифосфатом и образует цитидиндиацилглицеролдифосфат. Это соединение после рекомбинации с инозитом восстанавливает гидролизуемые фосфодиэстеразой фосфоинозитиды. Инозит, необходимый для этой реакции, образуется из инозитолмонофосфата. Реакция катализируется инозитол-1-монофосфатазой, активность которой блокируется ионами лития.
Именно этим процессом объясняется эффективное лечение ионами лития маниакально-депрессивных психозов и некоторых других заболеваний нервной системы. Блокада литием инозитол-1-монофосфатазы замедляет синтез в организме инозита и ослабляет протекающие в нейронах процессы, зависящие от метаболизма фосфоинозитидов. Инозитолтрифосфат вызывает освобождение кальция из мембран эндоплазматического ретикулума, по-видимому, связываясь со специальным рецептором. Несмотря на то, что процесс выброса кальция из внутриклеточных депо под действием фосфоинозитидов обнаружен в целом ряде клеток, механизм, с помощью которого он открывает внутриклеточные кальциевые каналы, окончательно не выяснен.
По мнению ряда исследователей, в результате передачи сигнала с помощью фосфоинозитидов пути передачи информации могут раздваиваться. Это происходит в результате того, что гидролиз фосфатидилинозитол-4,5-бисфосфата приводит к образованию двух вторичных мессенджеров: инозитолтрисфосфата и диацилглицерола.
Диацилглицерол (ДАГ) выступает в качестве вторичного мессенджера, так как он инициирует механизмы, в результате которых активируются два типа протеинкиназ: протеинкиназа С и цГМФзависимая киназа. При этом фосфолипаза С играет ключевую роль в процессе переноса сигналов с рецепторов, которые непосредственно не связаны с аденилатциклазой, но регулируют скорость метаболизма фосфоинозитидов.
Вклад каждой из ветвей инозитидного пути передачи сигнала может быть исследован с помощью химических соединений, имитирующих действие одного из двух вторичных мессенджеров, образующихся в результате гидролиза фосфоинозитидов и, следовательно, активирующих эти пути регуляции по отдельности. Действие ДАГ имитируется форболовыми эфирами, так как эти соединения вызывают активацию протеинкиназы С. Форболовые эфиры – это соединения растительной природы, их выделяют из семян восточноазиатского растения Croton tigtium. Они резко ускоряют инициацию опухолей канцерогенами. Действие инозитолтрисфосфата имитируется кальциевыми ионофорами, среди которых уже упоминавшийся А 23187.
Между двумя путями передачи сигнала через фосфоинозитидный цикл существует синергизм. Так, например, в тромбоцитах форболовый эфир и кальциевый ионофор совместно вызывают такую мощную секрецию серотонина, какую ни одно из этих соединений по отдельности вызывать не может. Форболовый эфир и кальциевый ионофор могут инициировать деление некоторых клеток. Это позволило предположить, что сигнальные пути, связанные с обменом фосфоинозитидов, могут контролировать не только секрецию гормонов, транспорт ионов, но и пролиферацию клеток. Появились экспериментальные доказательства того, что форболовые эфиры способствуют опухолевому росту через активацию «диацилглицерольной ветви» фосфоинозитидного сигнального пути. Диацилглицерол может подвергаться дальнейшей деградации под действием диацилглицероллипазы до арахидоновой кислоты, которая превращается в разнообразные биологически активных метаболитов, в том числе эйкозаноиды и простагландины.
Суммируя сказанное выше, можно утверждать, что при функционировании рассмотренной регуляторной системы образуются по меньшей мере три вторичных посредника: диацилглицерол, ИФ 3 и арахидоновая кислота. Каждый из них выполняет специфические функции, включая увеличение содержания внутриклеточного Са 2+ и активацию Са 2+ -зависимых протеинкиназ. Эта сигнальная система распространена весьма широко, хотя в деталях механизм регуляции ею специфических клеточных функций пока не ясны.
МЕТАБОЛИЗМ ФОСФОИНОЗИТИДОВ И РЕГУЛЯЦИЯ ПРОНИЦАЕМОСТИ МЕМБРАН ДЛЯ ИОНОВ
Сa 2+ Каков же механизм увеличения внутриклеточной концентрации Са 2+ , вызываемой инозитолтрифосфатом и диацилглицеролом, появляющимися при гидролизе фосфатидилинозит-4,5-дифосфата? Следует иметь в виду, что, во-первых, для работы фосфолипазы С необходим ГТФ, то есть активация рецептора реализуется через G-белок, а во-вторых, метаболизм фосфолипидов обеспечивает, по крайней мере, два процесса: индукцию входа кальция в клетку из внешней среды по градиенту концентрации и выход ионов кальция в цитозоль из внутриклеточных депо. В модельных системах было показано, что фосфатидная кислота способна транспортировать через искусственные мембраны двухвалентные катионы с эффективностью, близкой к действию кальциевого ионофора А 23187. При этом ионы магния транспортировались значительно медленнее, чем кальция, что говорит о селективности фосфатидной кислоты в качестве кальциевого ионофора.
Относительно механизма ионофорного действия фосфатидной кислоты существует ряд гипотез, ни одна из которых в настоящее время не может быть признана достаточно доказательной. По-видимому, фосфатидная кислота каким-то образом модифицирует структуру липидного бислоя, образуя участки с небислойной упаковкой молекул. При этом на границе бислоя и монослоя образуются «каналы» для ионов кальция Хотя имеется громадное количество факторов, указывающих на то, что под действием фоинозитол-трисфосфата происходит освобождение Са 2+ в физиологических условиях, механизм его участия в открывании Са-канала не ясен. Он вызывает освобождение Са 2+ в клетках поджелудочной железы, стимулирует мобилизацию запасенного кальция в процессе индуцируемого гормоном поступления глюкозы из печени в кровь. В ооцитах лягушки поток ионов Са 2+ увеличивается вдвое в ответ на стимуляцию трифосфоинозитолом. Секреция гранул, осуществляющаяся яйцеклеткой сразу после оплодотворения (в результате чего образуется так называемая оболочка оплодотворения), также вызывается ионами кальция, концентрация которых в яйцеклетке резко увеличивается в ответ на внутриклеточную инъекцию трифосфоинозитидов.
На долю фосфатидилинозитола приходится лишь 2–8% всех фосфолипидов, содержащихся в клеточных мембранах эукариот. Структура его полярной головки представлена в таблице 1. Этот фосфолипид называют миоинозитолом, поскольку впервые он был выделен из мышечного гомогената. Небольшая часть фосфатидилинозитола фосфорилирована в положении 4 или в положениях 4 и 5. От 1 до 10% фосфатидилинозитола, присутствующего в мембране, приходится на долю ФИФ 2 . Этот компонент является, вероятно, первой мишенью для фосфатидилинозитол специфичной фосфолипазы С, которая активируется во многих клетках G-белками. Последующий гидролиз молекулы в плазматической мембране приводит к быстрому распаду фосфатидилинозитола и кратковременному возрастанию продуктов распада. Например, во время активации тромбоцитов за 90 с деградирует половина общего пула фосфатидилинозитола. Продукты распада участвуют как вторичные мессенджеры во многих клеточных процессах. Исследование этой системы в деталях еще не закончено, но самая общая схема может быть представлена на рис. 68. Последовательность событий такова.
Начальными продуктами гидролиза ФИФ 2 являются диацилглицерол и ИФ 3 . Диацилглицерол остается связан с мембраной, а ИФ 3 высвобождается в цитоплазму. Обычно жирные кислоты фосфатидилинозитола представлены стеариновой кислотой в положении 1 и арахидоновой кислотой в положении 2. ИФ 3 служит вторичнымым посредником, и его основной функцией, по-видимому, является мобилизация Са 2+ , аккумулированного в эндоплазматическом ретикулуме. Возможно, этот компонент путем прямого связывания открывает Са 2+ -специфичные каналы в эндоплазматическом ретикулуме, что приводит к выходу ионов кальция из ретикулума в цитоплазму, где его уровень возрастает в несколько раз (от 0,1 мкМ до 5-10 мкМ).
Одним из ферментов, регулируемых Са 2+ , является фосфолипаза С, которая при низкой концентрации Са 2+ использует в качестве субстрата преимущественно ФИФ 2 , но при более высокой концентрации Са 2+ , по крайней мере in vitro, использует нефосфорилированный фосфатидилинозитол. Наиболее важным ферментом, активируемым Са 2+ , является протеинкиназа С. Этот фермент локализован преимущественно в цитозоле до момента появления там диацилглицерола и Са 2+ . В присутствии обоих агентов протеинкиназа С приобретает способность связываться с мембраной, выбирая для этого кластеры, обогащенные фосфатидилсерином. В этих условиях наблюдается активация протеинкиназы С, причем она оказывается в непосредственной близости к мембранным субстратам, которые она готова фосфорилировать.
Эффекты, сходные с действием диацилглицерола, оказывают протеинкиназу С и форболовые эфиры, в связи с чем ее часто рассматривают как внутриклеточный рецептор этих соединений. В активированном состоянии протеинкиназа С эффективно фосфорилирует белки-мишени по серину и треонину.
ДРУГИЕ ТИПЫ ВТОРИЧНЫХ ПОСРЕДНИКОВ
Наиболее важными вторичными мессенджерами являются цAМФ, цГМФ, Ca 2+ , ИФ 3 , диацилглицерол и монооксид азота (NO). ГТФ превращается в цГМФ с помощью фермента гуанилатциклазы. В отличие от аденилатциклазы гуанилатциклаза не связана с мембранными рецепторами. Однако образование цГМФ частично сопровождается активацией трифосфоинозитидного цикла, поскольку некоторые его компоненты, по-видимому, вызывают активацию гуанилатциклазы. Известно, что цГМФ активирует специальные G-киназы, вызывающие фосфорилирование определенных белков, физиологическая роль которых пока не установлена. Повидимому, цГМФ может играть роль вторичного мессенджера в клетках нервной ткани. Под действием гормона, выделяемого специальными клетками мозга, в нервных клетках повышается уровень цГМФ, который инициирует сложный комплекс действий, приводящий к освобождению бабочки из куколки. цГМФ образуется двумя гуанилилциклазами – мембраносвязанной и цитозольной формами. Мембранный фермент активируется натрийуретическими гормонами (G-белки при этом не принимают участия), а растворимый (цитозольный) – радикалами NO’, СО и ●ОН.
Последние представляют собой новый класс неорганических регуляторов, проявляющих свойства иногда межклеточных, в иногда внутриклеточных регуляторов. цГМФ активирует ПК G, но, кроме того, изменяет активность и других белков, включая ионные каналы (как в случае реализации светового сигнала). Нет сомнений, что существует гораздо больше сигнал-трансдукторных систем, чем описано в настоящее время. В конце прошлого века были описаны сигнальные функции церамида, фосфатидной кислоты, циклоаденозиндифосфат-рибозы и даже 5′-АМФ (аденозинмонофосфата). Сейчас интенсивно изучаются связанные с ними сигнал-передающие пути.