
Система комплемента
Система комплемента представлена более чем 30 белками, носящими названия С1, С2, С3, …, С9, B, D, Р и т.д. Эти белки в отсутствие инфекции находятся в неактивной форме в крови и внеклеточной жидкости. В присутствии патогенов система комплемента активируется. Некоторые белки системы комплемента (С3, С2, С4, С5) расщепляются на два разных по размеру фрагмента – больший и меньший. Большие фрагменты, как правило, не растворимы и обладают ферментативной активностью.
Они обозначаются буквой «b». Легкие фрагменты растворимы и лишены ферментативной активности, обозначаются буквой «а». Исключение составляет С2-компонент комплемента, у которого при расщеплении образуется меньший, но не растворимый и обладающий ферментной активностью фрагмент. Молекулы С1q, С1r и С1s, наоборот, не являются продуктами расщепления С1, но в процессе активации комплемента они объединяются и вместе образуют активную молекулу С1.
Горизонтальная черта над комплексом, состоящим из нескольких компонентов комплемента, например C4bC2a, говорит о наличии у этого соединения ферментной активности.

Существует, по крайней мере, три пути активации комплемента (рис. 1).
Классический путь инициируется при связывании белков системы комплемента с некоторыми молекулами бактериальной поверхности или с комплексом антитело–антиген.
Лектиновый путь опосредован действием протеинов лектинового типа (маннозосвязывающего лектина и фиколинов), связывающих углеводные компоненты гликопротеинов на поверхности бактерий.
Альтернативный путь служит, прежде всего, для усиления действия двух первых путей, но может активироваться и спонтанно.
Лектиновый, или маннозосвязывающий, путь активации системы комплемента. В состав оболочки грамположительных и грамотрицательных бактерий, дрожжеподобных грибов входят гликопротеины – белки, которые в посттрансляционной фазе связывают молекулы сахаров, в том числе маннозу. Клетки организма человека также экспрессируют гликопротеины, но сахара, входящие в их состав прикрыты сиаловыми кислотами.
Свободные (несиализированные) сахара на мембранных гликопротеинах являются характерной особенностью бактериальных клеток.
В результате свободная манноза на их поверхности активирует специальный белок, носящий название маннозосвязывающего лектина (МСЛ). Этот протеин относится к белкам острой фазы воспаления, синтезируется печенью и обычно присутствует в сыворотке крови в небольшой концентрации. В случае инфицирования синтез его в рамках острофазового ответа резко усиливается, МСЛ является неактивным проферментом.
В плазме он формирует комплексы с сериновыми протеазами. Когда молекула МСЛ связывается с остатками маннозы на поверхности патогена, в ней происходят конформационные изменениям, активируются связанные с МСЛ сериновые протеазы – комплекс МСЛ с сериновыми протеазами становится активным ферментом. Этот комплекс расщепляет молекулу комплемента С4, находящуюся в растворенном состоянии в межклеточной жидкости, на С4а и С4b. С4b выпадает в осадок, С4а остается в растворе. С4b является ферментом для С2 и расщепляет С2 на С2а и С2b. С2b остается в растворе, С2а выпадает в осадок и вместе с С4b образует комплекс C4bC2a, являющийся С3-конвертазой. Последняя с большой скоростью расщепляет С3-компонент комплемента на два фрагмента – растворимый С3а и выпадающий в осадок С3b. В результате внедрившаяся бактерия быстро покрывается молекулами С3b, а вокруг нее создается облако из хемоаттрактанта С3а.
Следует отметить, что лектиновый путь служит для распознавания не только бактерий, но и собственных погибших клеток. Электрохимические изменения, происходящие в результа51 те гибели клетки, приводят к утрате сиаловых кислот с ее поверхности, открываются молекулы сахаров, которые связывает МСЛ, – запускается лектиновый путь активации комплемента. По С3а-следу макрофаги легко находят и утилизируют погибшие клетки, покрытые С3b.
Классический путь активации системы комплемента. Процесс активации комплемента по классическому пути схож с лектиновым путем, за исключением начальных этапов. Активация системы комплемента по классическому пути начинается с формирования молекулы С1 из одной большой субъединицы С1q и двух сериновых протеаз С1r и С1s, присутствующих в растворенном виде во внеклеточной жидкости. Субъединица C1q может связываться с разными лигандами на поверхности бактерий – с липотейхоевыми кислотами на грамположительных бактериях; с C-реактивным белком, который прикрепляется к фосфохолиновым остаткам поверхностных бактериальных молекул, таких как пневмококковый полисахарид, а также с константными фрагментами (Fс-фрагментами) антител, связанных с антигеном. Наиболее активно связывают C1q IgM. Быстрый синтез IgM в рамках врожденного иммунного ответа в слизистых оболочках осуществляется особой минорной субпопуляцией В-лимфоцитов – В 1 -клетками (см. ниже).
Соединение молекул С1q с лигандами активирует присоединение к С1q одной или нескольких пар молекул С1r и С1s. Образуется комплекс C1qr2s2 (С1-эстераза), обладающий ферментной активностью. С1-эстераза по строению и механизму активации комплемента похожа на комплекс МСЛ с сериновыми протеазами. Поэтому далее процесс идет аналогично лектиновому пути активации комплемента. C1qr2s2 расщепляет С4 компонент комплемента на С4а и С4b. С4b выпадает в осадок и расщепляет С2 на С2а и С2b. С2b остается в растворе, С2а выпадает в осадок и вместе с С4b образует комплекс C4bC2a, обладающий С3-конвертазной активностью. С3-конвертаза расщепляет С3-компонент комплемента на С3b и С3а.
В сыворотке здоровых людей присутствует сывороточный ингибитор С1-эстеразы – С1 inh . Он прекращает активацию СК по классическому пути, так как обладает способностью расщеплять C1qr2s2. Генетически детерминированный дефицит С1 inh является причиной наследственного ангионевротического отека, при котором вследствие чрезмерного накопления анафилактогенных фрагментов (С4а, С3а) комплемента развиваются отеки, иногда представляющие угрозу жизни.
Альтернативный путь активации системы комплемента. Альтернативный путь обычно включается в процессе активации системы комплемента по лектиновому и классическому путям и служит для их усиления, но может запускаться и спонтанно. Образующиеся в результате активации классического и лектинового пути молекулы С3b плотно связываются с поверхностью бактерии и фиксируют фактор В, находящийся в плазме и тканевой жидкости. В результате этого конформационные свойства фактора В изменяются и делают его доступным действию фактора D, который расщепляет В на фрагменты Ва и Вb. Вb выпадает в осадок и совместно с фактором С3b образует нестабильное соединение C3bBb. К C3bBb присоединяется пропердин (фактор Р) – образуется стабильный комплекс C3bBbP, называющийся С3-конвертазой альтернативного пути и являющийся мощным ферментом, который расщепляет С3-компонент на С3а и С3b. В результате начинается своего рода цепная реакция: вновь образовавшиеся фрагменты С3b формируют новые молекулы конвертазы, которые включаются в процесс расщепления С3. Создается так называемая петля усиления синтеза С3b, благодаря которой очень быстро вся поверхность бактерии покрывается молекулами С3b.
Альтернативный путь активации системы комплемента может быть запущен в результате спонтанного гидролиза молекул С3. Образующиеся комплексы C3(H 2 О), связывают фактор В, который затем расщепляется фактором D на фрагменты Ва и Вb. Фрагмент Вb, соединяясь с C3(H 2 О), формирует C3(H 2 O)Bb – нестабильную С3-конвертазу, расщепляющую С3 на С3b и С3а. Эти процессы в отличие от лектинового или классического пути идут не на поверхности бактерий, а непосредственно в тканевой жидкости, и образующийся в ходе спонтанной активации С3b очень нестоек, в растворе быстро гидролизуется и инактивируется.
Однако если молекулы С3b случайно осядут на поверхности бактерий, то это приведет к образованию стабильной С3-конвертазы и запуску петли усиления синтеза С3b. В том случае, когда спонтанно образовавшийся С3b оседает на соб ственные клетки организма, С3-конвертаза не образуется, так как на наших клетках имеются особые молекулы, которые, связываясь на клеточной поверхности с С3b, конкурируют с фактором В, а также могут вытеснять Вb из уже сформированных конвертаз.
Такими защитными молекулами являются DAF (от англ. DecayAccelerating Factor – фактор, ускоряющий распад, или CD55), рецептор к комплементу 1-го типа (CR1, известный как CD35), а также молекулы MCP (от англ. Membrane Cofactor of Proteolysis – мембранный кофактор протеолиза, или CD46). Молекулы С3b, связанные с CR1, MCP или фактором Н, расщепляются и инактивируются фактором I – образуется инактивированный iС3b. Не фиксированные на клеточной мембране, а находящиеся в растворе конвертазы C3bBb или C3(H 2 O)Bb, также инактивируются под влиянием факторов I и H.
Мембраносвязанная конвертаза C3bBb может быть инактивирована фактором H только при наличии на клеточной мембране сиаловых кислот, к которым фактор H имеет сродство. На поверхностях бактериальных клеток, а также погибших или поврежденных собственных клеток сиаловых кислот нет.
Таким образом, наличие на поверхности собственных клеток сиаловых кислот, молекул DAF, CR1, MCP предотвращает спонтанную активацию комплемента по альтернативному пути на клетках организма, но не препятствует ее реализации при бактериальной агрессии или на поврежденных собственных клетках.
Формирование мембраноатакующего комплекса. С3-конвертазы альтернативного C3bBb, классического и лектинового путей C4bC2a способны присоединять фрагмент С3b, в результате чего формируются С5-конвертазы классического/ лектинового путей C4b2a3b и альтернативного пути (C3b) 2 Bb, расщепляющие фактор С5 на более крупный нерастворимый С5b фрагмент и мелкий растворимый С5а. Первый из перечисленных связывается с комплексом компонентов комплемента на клеточной мембране, второй – остается в жидкой фазе и реализует свою хемотаксическую активность, сходную с С3а. Расщепление С5 открывает терминальный этап активации системы комплемента – формирование мембраноатакующего комплекса (МАК).
Как на мембране, так и в растворе С5b обладает способностью связывать компонент С6 с образованием комплекса С5b6, который в свою очередь быстро связывает компонент С7, а затем – С8. Комплекс С5b678 насквозь пронизывает мембрану, фиксируясь на ней. Последний этап формирования МАК состоит в присоединении 12–20 молекул комплемента С9 к комплексу С5b678. Компонент комплемента С9 представляет собой белок, гомологичный перфорину. Как и перфорин, он способен полимеризоваться при контакте с фосфолипидами мембраны. В результате из молекул С9 формируется цилиндрический комплекс, который встраивается в мембрану и образует пору. Массовое формирование МАК нарушает целостность клеточной стенки, в результате чего клетка погибает.
Клетки человека экспрессируют защитный белок – протектин (CD59), который ингибирует присоединение C9 к комплексу C5b678 и тем самым предотвращает разрушение клеток организма вследствие спонтанной активации комплемента на стадии формирования МАК.
Связывание образующихся в большом количестве молекул С3b (значительно в меньшей степени С4b) с поверхностью бактерий называется опсонизацией бактериальной клетки и является важной функцией комплемента. Благодаря опсонизации значительно облегчается этап адгезии – прилипания бактерии к фагоциту. Это обусловлено тем, что фагоцитирующие клетки имеют на своей поверхности огромное количество рецепторов к компонентам комплемента (CR), поэтому могут неспецифически связывать любой патоген, опсонизированный комплементом. Известно, что процесс формирования фагосомы инициируется только в том случае, если не менее чем тысяча рецепторов на поверхности фагоцита свяжутся с соответствующими лигандами (поверхностными антигенами) фагоцитируемого объекта. Учитывая колоссальное антигенное разнообразие окружающей нас микрофлоры и присущую ей изменчивость, очевидно, что фагоцит не может экспрессировать по 1000 рецепторов, специфичных для каждого варианта патогенов. Поэтому наличие на фагоцитах рецепторов к компонентам комплемента значительно облегчает переход к следующей стадии фагоцитоза. Сигналы, поступающие от этих рецепторов, активируют цитоскелет фагоцита, в результате чего актиновые нити втягивают внутрь клетки мембрану с прилипшим объектом – формируется фагосома.
Компоненты комплемента С3а, С4а и С5а являются активными сосудорасширяющими факторами. При их значительном образовании может развиться циркуляторный коллапс, как при анафилактическом шоке, поэтому их еще называют анафилатоксины. Наиболее активным из них является С5a, наименее – С4a. Действие этих молекул на клетку реализуется через рецептор, связанный с G-протеином. С3a, С4a и С5a расширяют артериолы, а также повышают проницаемость сосудов – жидкость начинает выходить из артериол, расположенных в зоне бактериальной агрессии. Кроме того, молекулы С3a, С4a и С5a стимулируют экспрессию молекул адгезии на эндотелии сосудов, в результате происходит усиление миграции клеток из просвета сосудов в ткани к месту инфицирования. С5а усиливает экспрессию рецепторов к комплементу CR1 и CR3 на моноцитах и макрофагах, что повышает фагоцитарную активность этих клеток. Связывание молекулы С5а со своими рецепторами на фагоцитах является необходимым условием для активации фагоцитоза. Молекулы С3a и С5a также действуют на тучные клетки подслизистого слоя, стимулируя выброс ими гистамина и ФНО-α, которые способствуют развитию воспаления. Таким образом, одна из важнейших функций СК – запуск и поддержание местной воспалительной реакции.
Система комплемента играет очень большую роль в реализации противоинфекционной защиты. Доказывает это наличие ряда иммунодефицитных заболеваний, обусловленных врожденными дефектами СК. Дефицит ранних компонентов лектинового и классического путей активации СК (С1–С4, МСЛ) проявляется снижением устойчивости к любым бактериальным инфекциям и увеличением вероятности аутоиммунных, особенно системных иммунокомплексных, заболеваний. При дефектах ранних белков альтернативного пути активации СК снижается устойчивость к гноеродным, преимущественно к грамотрицательным, бактериям. При генетических дефектах, приводящих к нарушению продукции или структуры белков поздних компонентов комплемента (С5–С9), повышается риск заболеваний только одним видом инфекции – нейссериями. Устойчивость ко всем остальным инфекциям при этом не нарушается.
Паттернраспознающие рецепторы
Важнейшую роль в реализации механизмов врожденного иммунитета играют паттернраспознающие рецепторы, или PRR (от англ. Pattern Recognition Receptors). Эти рецепторы распознают молекулы, называемые PAMP (от англ. Pathogen-Associated Molecular Patterns), которые отсутствуют в организме-хозяине, но характерны для разных патогенов (вирусов, бактерий, грибов, простейших, паразитов) и как бы ассоциированы с патогенностью.
Выделяют 4 группы паттернраспознающих рецепторов в зависимости от их расположения в клетке и функций:
- свободные сывороточные рецепторы;
- связанные с мембраной фагоцитарные рецепторы;
- связанные с мембраной сигнальные рецепторы;
- цитоплазматические сигнальные рецепторы.
Свободные сывороточные рецепторы. К этой группе относят, например, маннозосвязывающий протеин. Механизм его действия изложен при описании лектинового пути активации комплемента.
Связанные с мембраной фагоцитарные PRRs. Рецепторы этой группы экспрессируют фагоцитирующие клетки. Распознавание рецептором лиганда на поверхности микроорганизма стимулирует, главным образом, непосредственно фагоцитарную активность. Связанные с помощью этих рецепторов патогены интернируются и разрушаются в фаголизосоме.
Рецептор к маннозе MR (от англ. Mannose Receptor) экспрессируется макрофагами и дендритными клетками. Распознает неприкрытые сиаловыми кислотами остатки маннозы на поверхности грибов, бактерий и вирусов.
Дектин-1 экспрессируется макрофагами, нейтрофилами и дендритными клетками. Распознает и связывает β-1,3-связанные глюканы (полимеры глюкозы), имеющиеся на поверхности многих микроорганизмов.
Рецепторы к компонентам комплемента (CRs): CR1 связывает С3b-компоненты комплемента, опсонизирующие микроорганизмы, CR3 связывает β-глюканы различных бактерий.
Рецепторы-мусорщики класса А, или SR-A I, SR-A II (от англ. Scavenger Receptors A), и макрофагальные рецепторы с коллагеновой структурой MARCO (от англ. Macrophage Receptor with a Collagenous Structure) связывают различные компоненты бактериальной клеточной стенки и активируют образование фагосомы.
Рецепторы-мусорщики класса B (SR B) связывают и помогают интернировать липопротеины высокой плотности.
Связанные с мембраной сигнальные рецепторы. Сигнальные PRRs стимулируют движение фагоцитов, процесс фагоцитоза и выработку фагоцитировавшими клетками активных веществ. Среди них выделяют две основные группы: G-протеинсвязанные рецепторы и Toll-like рецепторы.
G-протеинсвязанные рецепторы получили свое название за то, что после соединения с лигандом становятся способными активировать особые внутриклеточные сигнальные G-белки, которые, в свою очередь, активируют различные антимикробные механизмы в фагоцитирующих клетках, в частности образование активных форм кислорода и азота вследствие активации ферментов (NADPH-оксидаз и NO-синтазы). В результате активации NADPH-оксидаз возрастает потребление кислорода клеткой и синтезируется супероксид анион (О 2 ), а затем и другие активные формы кислорода – (пероксид водорода Н2О2, синглетный кислород О 2 и др.), свободные ради калы (гидроксил-радикал, галогенсодержащие продукты). Процесс образования активных форм кислорода и свободных радикалов, обладающих высокой антимикробной активностью, называется кислородным взрывом. Он развивается в течение нескольких секунд, что определяет его название – взрыв. В нейтрофилах этот процесс протекает гораздо более интенсивно, чем при активации макрофагов. Вещества, образующиеся в результате кислородного взрыва, не только потенцируют активность лизосомальных ферментов, но и сами обладают токсическим действием и вызывают разрушение бактерий в фаголизосоме.
Активные формы азота образуются при окислении аргинина. Этот процесс катализируется NO-синтазой. Известно три изоформы NO-синтазы: эпидермальная и нейрональная NO-синтазы, экспрессируемые спонтанно в соответствующих клетках, а также макрофагальная NO-синтаза, которая является индуцибельной (iNOS). Основными индукторами iNOS являются провоспалительные цитокины ИФ-γ и ФНО-α. Именно макрофагальная изоформа ответственна за образование активных форм азота в фагоцитах. Основные продуценты активных форм азота – моноциты/макрофаги, хотя нейтрофилы также способны синтезировать некоторое количество оксида азота. К активным формам азота наиболее чувствительны внутриклеточные патогены – микобактерии, грибы, простейшие. Образование оксида азота возможно вне фагосом в цитозоле, поэтому он действует не только на фагоцитируемые микроорганизмы, но и на вирусы, микобактерии, грибы и простейшие. Оксид азота обладает также тумороцидным эффектом.
К группе G-протеинсвязанных рецепторов относятся рецепторы к fMLP, С5а- и С3а-компонентам комплемента, хемокиновые рецепторы. Рецептор fMLP (fMet-Leu-Phe) распознает последовательность формилметионин–лейцин–фенилаланин бактериальных полипептидов. Сигнал от этих рецепторов приводит к усилению продукции бактерицидных веществ в фаголизосомах.
Рецепторы к С5а- и С3а-компонентам равномерно располагаются на всей поверхности фагоцитов (прежде всего нейтрофилов и макрофагов) и помогают им найти место, где произошло инфицирование, а также усиливают антимикробную активность этих клеток. В результате активации комплемента вокруг бактерии образуется облако из растворимых фрагментов комплемента С3а и С5а – концентрация этих молекул уменьшается пропорционально увеличению расстояния от бактерии. За счет этого количество занятых рецепторов на ближней к бактерии поверхности фагоцита будет выше, чем на его противоположной стороне.
Создается своего рода разность потенциалов, и клетка устремляется в ту сторону, на которой с молекулами С3а и С5а провзаимодействовало большее количество рецепторов. Фагоцит будет двигаться в сторону самой высокой концентрации С3а и С5а, т.е. к бактерии, на поверхности которой эти молекулы образуются.
Направленное движение нейтрофилов и макрофагов по градиенту концентрации молекул С3а и С5а в сторону бактерии называется хемоаттракцией, а эти вещества – хемоаттрактантами. Хемокиновые рецепторы позволяют клеткам иммунной системы осуществить хоминг, выйти из сосуда и найти место, где развивается воспаление. Нейтрофилы, например, в отличие от макрофагов, не являются резидентными тканевыми клетками, они должны выйти из системного кровотока и попасть в место инфицирования. Здесь благодаря ряду факторов (хемокины, комплемент и PRRs) нейтрофил обнаруживает объект для фагоцитоза, приклеивается к нему и втягивает объект внутрь. Формируется фагосома, которая сливается с первичными и вторичными гранулами нейтрофилов, содержащими антимикробные пептиды и другие активные вещества, а также с лизосомами, содержащими ферменты, необходимые для уничтожения бактерии.
Toll-like рецепторы (TLRs, от англ. Toll-Like Receptors) участвуют в реализации эволюционно очень древнего защитного механизма. Впервые Toll-рецепторы были обнаружены у Drosophila melanogaster. У млекопитающих рецепторы, схожие с Toll-рецепторами дрозофилы, так и назвали – Toll-like receptors, что в переводе с английского значит «рецепторы, похожие на Toll-рецепторы».
У человека описано 10 TLRs, 5 из которых располагаются внутриклеточно, а остальные – на наружной поверхности клетки. Внеклеточные TLRs распознают наиболее общие для разных видов микроорганизмов (преимущественно бактерий) молекулярные паттерны (табл. 4).
Таблица 4. Внеклеточные TLRs
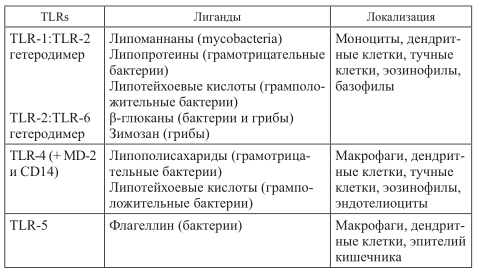
Представленные рецепторы, за исключением TLR-5, работают в паре, например TLR-1 в паре с TLR-2, TLR-2 – с TLR-6. При появлении антигена, на который они могут реагировать, происходит полимеризация парных рецепторов и образуется гетеродимерная молекула, в которой две разные молекулы связаны между собой: TLR-1:TLR-2 или TLR-2:TLR-6. Рецептор TLR-4 тоже работает в паре, но с комплексом молекул MD-2 и CD14. Молекула CD14 имеется на поверхности нейтрофилов, макрофагов, дендритных клеток и функционирует самостоятельно как фагоцитарный рецептор, который связывает липополисахариды. Но на макрофагах и дендритных клетках CD14 выполняет также роль дополнительной молекулы для TLR-4, что необходимо для реализации функции этого TLR.
Внутриклеточные TLRs распознают преимущественно продукты вирусного происхождения (табл. 5). Эти рецепторы способны дифференцировать нуклеиновые кислоты вирусов и человека. В наших клетках присутствуют только одноцепочные молекулы РНК. Появление двухцепочной РНК в клетке значит, что она вирусного происхождения, ее связывает TLR-3. TLR-9 распознает ДНК вирусов по неметилированным последовательностям цитозин–гуанин. У человека эти последовательности высокометилированы. Отличить вирусную одноцепочную РНК от одноцепочной человеческой РНК сложно. TLR-7 и TLR-8 расположены не в самой цитоплазме, а в мембранах внутриклеточных везикул, в которые может попадать только вирусная одноцепочная РНК. Доступ собственных РНК в эти везикулы затруднен.
Вид TLRs определяет события, происходящие после их взаимодействия с лигандами. Существуют специальные внутриклеточные адаптеры, которые опосредуют действие активированных TLRs на генетический аппарат клетки. Жгутиковый рецептор TLR-5 и вирусные TLR-7, TLR-8 и TLR-9 взаимодействуют с внутриклеточным адаптером MyD88, который инициирует транскрипционный фактор NFκβ (от англ. Nucleus Factor) и IRF7 (от англ. Interferon Regulator Factor). Транскрипционный фактор NFκβ активирует гены, кодирующие ФНО-α, ИЛ-1β, ИЛ-6, а фактор IRF7 – гены ИФ-α и ИФ-β. Таким образом, внутриклеточные агенты и жгутики бактерий стимулируют синтез определенных провоспалительных цитокинов.
Таблица 5. Внутриклеточные TLR
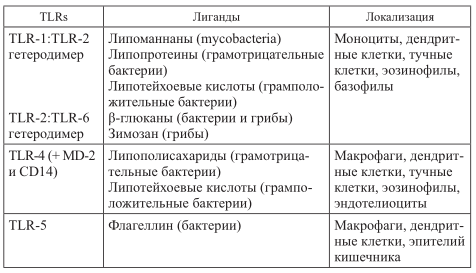
TLR-3, связавшись с двуспиральной РНК, взаимодействует с адаптером TRIF, который инициирует транскрипционный фактор IRF3, активирующий гены ИФ-β и молекулы MIC-A и MIC-B. Таким образом, РНК-вирусы запускают синтез интерферона β и экспрессию молекул HLA Ib класса.
Гетеродимеры, образованные TLR-2 (TLR-2/1 и TLR-2/6), запускают только MyD88/MAL. Следовательно, грамположительные и грамотрицательные бактерии посредством этого адаптера стимулируют продукцию только ФНО-α, ИЛ-1β и ИЛ-6. TLR-4, реагирующий на липополисахариды, действует как через адаптер MyD88/MAL, так и через TRIF/TRAM. Таким образом, запускаются все сигнальные пути и соответственно синтезируются все указанные выше провоспалительные цитокины и интерфероны, а также усиливается синтез антибактериальных пептидов, если процесс происходит в клетках Панета.
Таким образом, при инвазии патогенными микроорганизмами активируются TLRs фагоцитов и других клеток, что приводит к запуску синтеза интерлейкинов и интерферонов и развитию воспаления. Кроме того, активация транскрипционных факторов приводит к синтезу ряда хемокинов, привлекающих в очаг внедрения инфекции клетки иммунной системы, прежде всего нейтрофилы и макрофаги.
При фагоцитозе своих погибших клеток или контакте с непатогенными молекулами (например, поступающими с пищей) процесс воспаления не запускается, так как не активируются инициирующие воспаление TLRs.
Цитоплазматические сигнальные рецепторы. Процессы, происходящие внутри клетки, кроме TLRs контролируют также цитоплазматические сигнальные PRRs, которые в отличие от первых находятся не в везикулах, а растворены в цитоплазме и экспрессируются эпителиальными клетками, макрофагами и дендритными клетками, клетками Панета кишечника. Они реагируют на различные продукты:
NOD1 – чувствителен к продуктам распада пептидогликанов грамотрицательных бактерий (iE-DAP), таких как Salmonella и Listeria (группа NOD-like рецепторов – NLRs);
NOD2 – распознает мурамил дипептид, который входит в состав пептидогликана большинства бактерий (группа NLRs);
NALP3 – рецептор, реагирующий на стресс или повреждение клетки. В частности, на общий триггер – утечку цитоплазматического иона K + , происходящую в клетках при стрессе или повреждении;
RIG-I – распознает одноцепочную РНК некоторых вирусов (Paramyxoviruses, Orthomyxoviruses и Flaviviruses), находящуюся непосредственно в цитоплазме, а не в везикулах;
MDA-5 – чувствителен к двуспиральной вирусной РНК.
Активация этих рецепторов (связывание с лигандом) приводит к активации транскрипционного фактора NFκβ, который инициирует синтез провоспалительных цитокинов ФНО-α, ИЛ-1β, ИЛ-6, усиливает экспрессию корецепторных молекул B7.1 (CD80) и B7.2 (CD86) на дендритных клетках и макрофагах.