
СИСТЕМЫ ГЕНЕРАЦИИ И УТИЛИЗАЦИИ АКТИВНЫХ ФОРМ КИСЛОРОДА И ПРОДУКТОВ ПЕРЕКИСНОГО ОКИСЛЕНИЯ ЛИПИДОВ
Биомембранология Болдырев А.А., Кяйвяряйнен Е.И., Илюха В.А.
В основе современных представлений о механизме перекисного окисления липидов лежит выдвинутая в 1887 г. гипотеза А.Н. Баха о возможности непосредственного присоединения молекулярного кислорода к органическим молекулам с образованием гидроперекисей. Субстратом окисления в биологических мембранах являются полиненасыщеные жирные кислоты, входящие в состав фосфолипидов.
Перекисное окисление липидов (ПОЛ) – сложный процесс, протекающий как в животных, так и в растительных тканях. Он включает в себя активацию и деградацию липидных радикалов, встраивание в липиды предварительного активированного молекулярного кислорода, реорганизацию двойных связей в сопряженных двойных связях и, как следствие, деструкцию мембранных липидов и самих биомембран. В результате развития свободнорадикальных реакций перекисного окисления липидов образуется разнообразные продукты, в том числе спирты, кетоны, альдегиды и эфиры.
Перекисное окисление мембранных фосфолипидов является одним из наиболее распространенных механизмов деструкции мембранных структур, оно регистрируется при развитии целого ряда патологических состояний. Тем не менее, эти процессы протекают и в нормальной клетке и регулируются целым рядом ферментов: НАДФ(Н)-зависимыми микросомальными оксигеназами, циклооксигеназами и липоксигеназами. Продукты перекисного окисления липидов – предшественники синтеза простагландинов, тромбоксанов, простациклина, лейкотриенов и липоксинов.
Схематически процесс перекисного окисления липидов можно представить следующим образом. Атака молекулярного кислорода приводит к образованию перекисного радикала, который может взаимодействовать с другой молекулой липида, разрушает ее с образованием нового липидного радикала. Одним из продуктов этой реакции является гидроперекись липида – сравнительно устойчивое соединение. Кроме этого из перекисного радикала может образовываться эндоперекисный радикал липида, распад которого приводит к формированию ряда продуктов, в том числе малонового диальдегида.
Полиненасыщенные жирные кислоты как в свободном виде, так и в составе липидов могут претерпевать спонтанное перекисное окисление в липидных пленках и в истинных растворах, гомогенных системах, и даже в водных средах, в которых липиды образуют липосомы и монослои, то есть в системах с различными фазами. Скорость липопереокисления зависит от природы субстрата (от ненасыщенности жирных кислот, расположения двойных связей и т.д.), от температуры, а также от присутствия в системе катализаторов. Наиболее активными катализаторами липопереокисления являются Fe 2+ и аскорбиновая кислота, – природные соединения, присутствующие в клетках и тканях.
Реакции неферментативного свободнорадикального липопереокисления идут по кинетике цепных процессов. Эти свободнорадикальные реакции эффективно ингибируются антиоксидантами – веществами, способными служить ловушками радикалов. К таким соединениям относятся токоферолы, таурин, мелатонин, мочевая кислота, карнозин и некоторые другие природные вещества. Существуют и синтетические соединения, также обладающие мощными антиоксидантными свойствами, среди них наиболее широко известны ионол, пробукол, мексидол и другие. Некоторые из них используются в качестве лекарственных препаратов.
Фосфолипиды в нативных мембранах эффективно защищены от неферментативного перекисного окисления самой структурной организацией мембран, а также специальными антиоксидантными системами, регулирующими концентрации активных форм кислорода в клетке. По этой причине скорость неферментативного липопереокисления в биологических мембранах не коррелирует с ненасыщенностью фосфолипидов и определяется особенностями структуры окисляемых мембран, наличием в них антиоксидантов и рядом других факторов. По–видимому, в нативных мембранах неферментативное перекисное окисление не играет существенной физиологической роли. Тем не менее, продукты перекисного окисления липидов регистрируются в тканях при ряде патологических процессов. При этом введение в организм антиоксидантов существенно снижает уровень липопереокисления. Однако возможно, что антиоксиданты могут влиять не только на ферментативные системы, связанные с образованием перекисей, но и на ферменты, участвующие в их нейтрализации.
Сравнительно недавно были открыты специфические ферменты, осуществляющие ферментативное перекисное окисление липидов. Сначала эти ферменты были обнаружены в растениях, а затем в некоторых животных тканях. Липоксигеназы животных (впервые обнаруженные в ретикулоцитах), в отличие от растительных липоксигеназ, окисляют не только неэстерифицированные полиненасыщеные жирные кислоты, но и полиеновые кислоты, входящие в состав фосфолипидов. При этом добавление к мембранным препаратам фосфолипазы А 2 резко усиливает липопереокисление. По-видимому, активация эндогенных фосфолипаз является одним из механизмов регуляции липопереокисления in vivo.
В микросомах печени существует ферментативная НАДФ(Н)зависимая система липопереокисления. В этих же мембранных фракциях в опытах in vitro легко запускается неферментативное липопереокисление, индуцируемое присутствием ионов Fe 2+ и аскорбиновой кислоты.
Известно, что окисление липопротеинов низкой плотности (ЛНП) может индуцироваться металлами переменной валентности (как в свободном так и в связанном состоянии). Однако, влияние металла на интенсивность окисления в значительной степени зависит от того с каким лигандом он связан. Так, белки-транспортеры железа – трансферрин и лактоферрин содержат его в форме, препятствующей взаимодействию с АФК. Среди других белков, являющихся хелаторами железа – гемосидерина, ферредоксина и ферритина, только последний связывает железо недостаточно прочно и может частично предоставлять его для взаимодействия с радикалами кислорода. В этот процесс могут быть вовлечены ферментативные механизмы генерации активированных кислородных метаболитов в клетке: НАДФН-оксидаза, миелопероксидаза, NO-синтаза, липоксигеназы и др. Выявляемые в нативных ЛНП сыворотки крови гидроперекиси свидетельствуют о возможности сорбции последних из клеток тканей. При этом в ЛНП содержится более 65% всех гидроперекисей сыворотки крови, в организме человека они являются главными переносчиками гидроперекисей.
Липоксигеназы (КФ 1.13.11.12) катализируют окисление полиненасыщенных жирных кислот с образованием гидропероксидов:
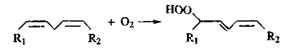
Свободные (неэстерифицированные) жирные кислоты являются предпочтительным субстратом для липоксигеназ. В клетках животных эти ферменты отвечают за синтез лейкотриенов, образующихся при окислении арахидоновой кислоты. Так как субстратом для липоксигеназ являются ненасыщеные жирные кислоты, высвобождающиеся из мембран в результате действия фосфолипазы А 2 , то ингибирование этого фермента снижает окислительную модификацию ЛНП эндотелиоцитами.
Ферментативное перекисное окисление липидов протекает в мембранах эндоплазматического ретикулума и инициируется НАДФ(Н). В реконструированных системах удалось индуцировать ферментативное липопереокисление встроенным в липосомы флавопротеином – первым компонентом микросомной цепи окисления. В основе инициации ферментативного липопереокисления лежит активация кислорода в ходе переноса электронов от НАДФ(Н) к флавопротеину. Тем не менее активные формы кислорода могут в определенных условиях образовываться при участии цитохрома Р 450 . В процессе его функционирования могут образовываться не только перекиси липидов, но и перекись водорода, которая способна инактивировать цитохром Р 450 . По этой причине семейство цитохрома Р 450 получило название «ферментов-самоубийц». Такой пример обратной регуляции работы микросомальных ферментов лишний раз подтверждает, что АФК в клетках выполняют сигнальные функции.
Между липооксигеназной и циклооксигеназной системами существует определенная связь. Эти ферменты обнаруживаются в одних и тех же тканях, имеют общие специфические ингибиторы (например, эйкозатетраеновую кислоту), а их селективные ингибиторы, как правило, угнетают обе реакции, но действуют в различных концентрациях. Неконтролируемое усиление процесса липопереокисления может представлять опасность для клетки, так как может привести к патологии мембран. Поэтому кроме антиоксидантов (регулирующих стационарный уровень АФК) в клетке имеются специальные ферментативные системы, регулирующие уровень липопереокисления. Так, цитохром Р 450 может выступать в клетке в роли пероксидазы. Глутатионтрансферазы могут восстанавливать органические гидроперекиси, в том числе гидроперекиси полиненасыщеных жирных кислот.
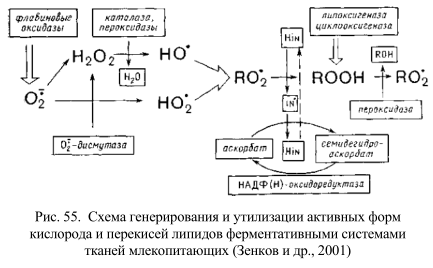
Кроме того, в цитозоле клеток содержатся восстанавливающие перекиси липидов глутатионпероксидазные системы. Существуют ферментативные системы, нейтрализующие АФК, а есть те, что инактивируют перекисные радикалы (рис. 55). В нормально функционирующей клетке уровень утилизации липопероксидов значительно превышает уровень активности систем, генерирующих липопереокисление, поэтому в норма липоперекиси в заметных количествах не накапливаются.
Активность циклооксигеназ и липооксигеназ регулируется продуктами их реакции; небольшие количества перекисей активируют эти ферменты, в то время как накопление продуктов перекисного окисления в значительных количествах может приводить к необратимому ингибированию как циклооксигеназ, так и липооксигеназ. Таким образом, в клетке существует авторегуляция ферментативного ПОЛ. Однако уровень перекисного окисления липидов в тканях in vivo в определенных условиях может становиться значительным, и начать играть существенную физиологическую роль. Так, ферментативное перекисное окисление липидов запускает механизм «разборки» старых и ненужных мембранных структур. В живых организмах представлены различные механизмы активации молекулярного кислорода, посредством которых образуется гетерогенный по своим физико–химическим свойствам класс активных форм кислорода. Общая особенность активных форм кислорода – высокая реакционная способность и малые значения времен жизни в биологических субстратах (табл.11), что делает их незаменимым инструментом передачи информации на короткие дистанции.
Таблица 11 . Характерные значения времен жизни и радиусов диффузии АФК в биологических субстратах
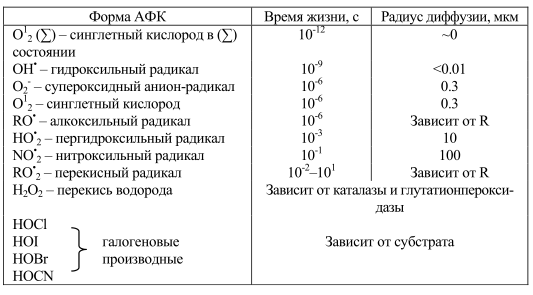
Так, дальнодействие ОН-радикала (радиус диффузии 23 Å) ограничено размером средней органической молекулы. Анион– радикал О2˙ и синглетный кислород обладают большим радиусом действия, сравнимым с размером клетки, однако даже на клеточном уровне их эффект строго локализован наличием высокоэффективного ферментативного антиоксиданта – супероксиддисмутазы (СОД), а также таких антиоксидантов, как витамин Е, который «улавливает» О2 ˙ на расстоянии ~ 50 Å. Сфера влияния радикалов NO распространяется на соседние клеточные структуры, такие как гладкомышечные стенки сосудов, вызывая их релаксацию, при этом оксид азота принципиально не отличается от гормональных мессенджеров и имеет свой «рецептор» – растворимую гуанилатциклазу. Хорошим дальнодействием обладает перекись водорода – малореакционная, незаряженная молекула.
Однако наибольшим дальнодействием, проявляющимся на тканевом и организменном уровне, обладают продукты радикальных реакций; так, процессы ПОЛ приводят к образованию альдегидов, эпоксидов, липидных перекисей, которые ингибируют синтез ДНК и деление клеток и в то же время индуцируют развитие опухоли. По-видимому, ПОЛ и его продукты, выступая в роли «первичного медиатора» стресса, представляют один из наиболее ранних регуляторных механизмов, который в процессе эволюции трансформировался в ферментативную эйкозаноидную регуляцию.
Супероксид образуется при взаимодействии молекул кислорода с НАДФН-оксидазной системой, а также с восстановленными флавинами, хинонами, тиолами, и в ходе реакции, катализируемой флавин-содержащим ферментом ксантиноксидазой. Супероксид-радикал и образующиеся из него другие формы активированного кислорода, вызывают перекисное окисление ненасыщеных жирных кислот, окисление SH-групп, разрушение триптофановых остатков в белках, повреждение ДНК, деполимеризацию кислых полисахаридов и другие реакции. Перекись водорода вызывает окисление SH-групп в белках, перекисное окисление ненасыщеных жирных кислот, однако скорость этих реакций относительно невелика, и главная опасность перекиси водорода для клетки заключается в ее способности генерировать гидроксильный радикал. В клетках супероксидный анион является промежуточным продуктом многих биохимических реакций – таких, как окисление тиолов, флавинов, хинонов, катехоламинов, птеринов, а также метаболизма ксенобиотиков.
Однако основные источники его образования – ферментативные системы: НАДФН-оксидаза фагоцитирующих клеток, ксантиноксидаза, митохондриальная цитохром с оксидаза и микросомальные монооксигеназы. Наибольшей способностью продуцировать О2 ˙ в животных организмах обладают фагоцитирующие клетки. АФК легко превращаются друг в друга. О2˙ – малоактивный радикал и не влияет на функционирование большинства ферментов, хотя и может инактивировать некоторые из них. Будучи нуклеофильным соединением, О2˙ окисляет липопротеины сыворотки и фосфолипиды мембран, что приводит к разрушению эритроцитов, выходу лизосомальных ферментов и образованию цитотоксинов.
Токсичность О2 ˙ в отношении клеток и микроорганизмов не вызывает сомнения, ярким примером тому могут служить фагоциты, полученные от больных хроническим гранулематозом. Они не могут восстанавливать кислород и вследствие этого обладают слабой микробицидной активностью. В нейтрофилах больных с синдромом Дауна (трисомия пО21 хромосоме) на 50% повышено содержание Cu,Zn-COД, в результате чего у них снижен стационарный уровень О2˙ и, соответственно, микробицидная активность. Вместе с тем, молекулярные механизмы цитотоксичности О2˙ неясны. Возможно, что сам супероксид-анион не обладает микробицидной активностью, а служит пусковым звеном каскада реакций, приводящих к образованию других форм АФК. В частности, СОД превращает его в Н 2 О2 , а миелопероксидаза трансформирует перекись в сильный окислитель гипохлорит (в некотором роде, активную форму хлора). В реакции Габера–Вейса из него образуется гидроксильный радикал, а взаимодействие О2˙ с оксидом азота (NO˙) приводит к образованию высокореакционного пероксинитрита (ONOО˙).
Защита живых организмов от окислительных повреждений не ограничивается ферментативными антиоксидантными системами, а осуществляется также большим количеством репарационных систем, специфическими протеолитическими ферментами, макрофагами и гепатоцитами, эффективно захватывающими окисленные липопротеины через специальные «скэвенджер»-рецепторы. Действие репарационных ферментов направлено на удаление и восстановление поврежденных молекул и структур, иногда их называют вторичной антиоксидантной системой. Как правило, с возрастом активность репарационных систем снижается, что является одной из причин накопления поломок биологических структур в пожилом возрасте. Свободнорадикальная теория старения имеет много веских аргументов.
Клетки снабжены рядом ферментов, осуществляющих реконструкцию поврежденных или измененных под действием АФК составных элементов мембраны. Опосредованное фосфолипазами удаление из мембраны поврежденных фосфолипидов – эффективный способ поддержания ее динамической целостности, позволяющий регулировать оборот мембранных липидов. Перекисное окисление липидов стимулирует липолитическую активность мембранной фосфолипазы А 2 , так как окисленные фосфолипиды являются для нее более предпочтительным субстратом, чем нативные. Такая избирательность фосфолипазы А 2 имеет важное физиологическое значение для процессов репарации и детоксикации мембран.
В организме α-токоферол защищает липопротеины от окисления совместно с водорастворимыми антиоксидантами: витамином С и мочевой кислотой. Липофильный α-токоферол эффективно взаимодействует с перекисными радикалами липидов и образует α-токоферильный радикал. Витамин С может восстанавливать αтокоферильный радикал, возвращая ему антиоксидантные свойства, при этом пара аскорбат/α-токоферол позволяет выводить радикалы из липидной фазы в водную фазу. Следует обратить внимание, что в организм животных и человека токоферолы попадают только с растительной пищей – существенный регулятор метаболизма, выполняющий функции не только антиоксиданта, получается из растительной пищи. Многие животные и человек не в состоянии синтезировать аскорбиновую кислоту. Через такие ключевые метаболиты мир растений и мир животных демонстрирует взаимозависимость.
Среди водорастворимых антиоксидантов (аскорбиновая и мочевая кислоты, билирубин, тиоловые белки) наиболее выраженным защитным эффектом против окисления ЛНП обладала аскорбиновая кислота. Сходным по свойствам с α-токоферолом является убихинол или коэнзим Q. Хотя содержание убихинола в ниже, чем содержание токоферола, и скорость его взаимодействия с перекисными радикалами меньше, чем у α-токоферола, однако он может перехватывать радикалы α-токоферола и эффективно переводить радикалы из липидной фазы в водную, взаимодействуя непосредственно с молекулярным кислородом.