
Нервная ткань
Нервная ткань образует центральную (головной и спинной мозг) и периферическую (нервы с их концевыми приборами, нервные узлы) нервные системы. Нервная ткань состоит из нервных клеток (нейронов) и клеток нейроглии. Нейрон с отходящими от него отростками является структурно-функциональной единицей нервной системы. Основная функция нейрона – это получение, переработка, хранение, проведение и передача информации, закодированной в виде электрических или химических сигналов. В связи с необходимостью проведения информации на дальние расстояния каждый нейрон имеет отростки. Один или несколько отростков, по которым нервный импульс приносится к телу нейрона, называется дендритом. Единственный отросток, по которому нервный импульс направляется от тела нервной клетки в сторону рабочего органа, – аксон. Нервная клетка динамически поляризована, т. е. способна пропускать нервный импульс только в одном направлении – от дендрита к телу клетки, где информация обрабатывается, и далее к аксону.

В зависимости от количества отростков нейроны различают:
- униполярные,
- биполярные, или двухотростчатые,
- мультиполярные, или многоотростчатые, (рис. 25).
К биполярным нейронам относятся и ложноуниполярные (псевдоуниполярные) нейроны – рецепторные нейроны спинномозговых узлов. Проксимальные отделы отростков этих нейронов вначале сливаются в один, после чего вскоре Т-образно разветвляются на аксон и дендрит. Размеры тел нервных клеток колеблются в пределах от 4–5 до 130–140 мкм, а длина отростков может достигать 1 м и более. Форма тел нейронов, количество дендритов, степень их ветвления широко варьируют в зависимости от расположения нейронов и выполняемой ими функции. Так, ложноуниполярные клетки спинномозговых узлов имеют округлое тело и неветвящиеся отростки.
Мультиполярные нейроны спинного мозга имеют тело неправильной формы, несколько слабо ветвящихся дендритов, отходящих в разные стороны, и один длинный аксон. От треугольных тел больших пирамидных нейронов коры головного (большого) мозга отходит большое количество коротких горизонтальных слабо ветвящихся дендритов, аксон отходит от основания клетки.
Грушевидные нейроны коры мозжечка имеют два крупных, сильно ветвящихся дендрита наподобие кроны дерева. Длинный аксон отходит от базальной поверхности клетки. Мелкие звездчатые и корзинчатые нейроны коры мозжечка богаты ветвящимися дендритами, их короткие аксоны не покидают коры мозжечка. В сером веществе полушарий большого мозга и мозжечка нейроны располагаются слоями, в других отделах нервной системы образуют скопления (ядра, узлы).
Снаружи нервная клетка покрыта оболочкой (цитолеммой), имеющей различную толщину, особенно в местах межклеточных контактов.Как правило, нейроны являются одноядерными клетками. Два ядра имеют некоторые нейроны ганглиев вегетативной нервной системы. Сферическое ядро диаметром около 18 мкм в большинстве нейронов занимает центральное положение (рис. 26). Гетерохроматин располагается по всему ядру. Хорошо выражено базофильное ядрышко, иногда их несколько. В перикарионе (вокруг ядер) находятся многочисленные сферические или удлиненные митохондрии диаметром около 0,1 мкм. Вблизи ядра располагаются структуры развитого комплекса Гольджи. Часто в зоне комплекса Гольджи обнаруживаются мультивезикулярные тельца.

Основной особенностью строения нейронов является наличие многочисленных нейрофибрилл и скоплений хроматофильной субстанции (вещество Ниссля), которая представляет собой группы параллельных цистерн зернистой эндоплазматической сети и полирибосомы, богатые РНК. Элементы незернистой эндоплазматической сети в теле клетки малочисленны. Они имеются лишь в аксонах и дендритах в виде трубочек, цистерн и пузырьков. Хроматофильная субстанция и свободные рибосомы располагаются по всей цитоплазме клетки и в дендритах, они отсутствуют в аксонном холмике и в аксоне. Между элемента ми зернистой эндоплазматической сети расположены многочисленные митохондрии, лизосомы, гранулы липофусцина. Митохондрии находятся и в отростках нейронов. Клеточный центр имеется в каждом нейроне, так как в нем происходит сборка микротрубочек. Нейрофибриллы, переходящие в отростки, образованы микротрубочками диаметром около 20 нм и нейрофиламентами толщиной 7–10 нм. Нейрофибриллы формируют в перикарионе густую трехмерную сеть, в ячейках которой лежат лизосомы, а также пронизывают цитоплазму отростков. Нейрофибриллы образованы пучками микротрубочек и микрофиламентов.
Макромолекулы, синтезируемые в перикарионе, направляются в самые отдаленные участки отростков. Посредством постоянного медленного транспорта со скоростью 1–3 мм/сут в отдаленные участки клетки доставляются ферменты, участвующие в синтезе медиаторов в пресинаптической части, и белки цитоскелета. Быстрый антероградный транспорт со скоростью около 400 мм/сут доставляет пузырьки в синаптические окончания. Кроме того, существует ретроградный транс порт от окончаний аксона к перикариону со скоростью 200–300 мм/сут, с помощью которого более крупные везикулы переносят частицы структур и вещества, подлежащие перевариванию в лизосомах. В дендритах также происходит медленный и быстрый транспорт.
В направлении длинной оси дендрита проходит множество нейротрубочек и небольшое количество нейрофиламентов. В цитоплазме дендритов находятся удлиненные митохондрии и небольшое количество цистерн незернистой эндоплазматической сети. Субстанция Ниссля имеется в крупных дендритах. Терминальные отделы дендритов часто колбообразно расширены.
Аксоны различных клеток вместе с оболочками имеют толщину в широких пределах (от 1 до 20 мкм). Толстые аксоны проводят нервные импульсы быстрее, чем тонкие. Аксон отходит от конического аксонного холмика тела клетки. Заканчивается аксон концевыми разветвлениями, которые образуют синапсы с другими клетками. Поверхность цитолеммы аксона (аксолеммы) гладкая. Аксолемма начального сег мента аксона и участка аксона в области перехвата Ранвье утолщена. В аксоплазме находятся тонкие удлиненные митохондрии, большое количество нейротрубочек и нейрофиламентов, пузырьки и трубочки незернистой эндоплазматической сети, единичные мультивезикулярные тельца. Рибосомы и элементы зернистой эндоплазматической сети отсутствуют в аксоплазме и имеются только в цитоплазме аксонного холмика, где расположены пучки нейротрубочек, в то время как количество нейрофиламентов здесь невелико.
Нейроны, которые передают возбуждение от точки восприятия раздражения в мозг и далее к рабочему органу, связаны между собой с помощью межклеточных контактов – синапсов (от греч. synapsis – связь), передающих нервный импульс от одного нейрона к другому. В синапсах происходит преобразование электрических сигналов в химические и обратно. В зависимости от того, какие части нейрона связаны между собой, различают синапсы аксосоматические, аксодендритические и аксоаксональные. У аксосоматического синапса окончания аксона одного нейрона образуют контакты с телом другого, у аксодендритического аксоны вступают в контакт с дендритами, у аксоаксональных кон тактируют одноименные отростки. Такое устройство нейронов создает возможность для проведения возбуждения по цепочкам нейронов благодаря наличию физиологических контактов в синапсах. Синапсы, в которых передача осуществляется с помощью биологически активных веществ, называются химическими, а сами вещества, осуществляющие передачу, – нейромедиаторами (от лат. mediator – посредник). У каждого нейронного синапса различают пресинаптическую и постсинаптическую части, разделенные синаптической щелью (см. рис. 26).

Heрвный импульс поступает по нервному окончанию в булавовидную пресинаптическую часть, которая ограничена пресинаптической мембраной. В цитоплазме пресинаптической части находится большое количество округлых мембранных синаптических пузырьков диаметром от 4 до 20 нм, содержащих медиатор. Когда нервный импульс достигает пресинаптической части, открываются кальциевые каналы и Са 2+ проникает в цитоплазму пресинаптической части, в результате чего его концентрация кратковременно возрастает. При повышении содержания Са 2+ синаптические пузырьки сливаются с пресинаптической мембраной и выделяют нейромедиатор в синаптическую щель шириной 20–30 нм, заполненную аморфным веществом умеренной электронной плотности.
Поверхность постсинаптической мембраны имеет постсинаптическое уплотнение. Нейромедиатор связывается с рецептором постсинаптической мембраны, что ведет к изменению ее потенциала – возникает постсинаптический потенциал. Таким образом, именно постсинаптическая мембрана преобразует химический стимул в электрический сигнал, величина которого прямо пропорциональна количеству нейромедиатора. Как только прекращается выделение медиатора, остатки его удаляются из синаптической щели, после чего рецепторы постсинаптической мембраны возвращаются в исходное состояние. Кроме нейронов, в нервной системе имеются клетки нейроглии (глиоциты), выполняющие многообразные функции: опорную, трофическую, защитную, изолирующую, секреторную. Среди них различают две группы: глиоциты, или макроглию (эпендимоциты, олигодендроциты и астроциты), и микроглию (рис. 27).
Эпендимоциты, имеющие кубическую или призматическую форму, выстилают изнутри желудочки мозга и спинномозговой канал, который, за редким исключением, у взрослого человека подвергается обратному развитию. Задняя срединная перегородка спинного мозга образована отростками, количество которых различно в разных отделах ЦНС. В некоторых участках ЦНС реснички эпендимоцитов многочисленны (водопровод среднего мозга). У взрослого человека эпендимоциты соединены между собой запирающими зонами и лентовидными десмосомами. Под слоем эпендимоцитов лежит слой недифференцированных глиоцитов.
Среди астроцитов, являющихся основными глиальными элементами мозга (ЦНС), различают протоплазматические и волокнистые астроциты. Первые имеют звездчатую форму, на их телах имеются многочисленные короткие выпячивания, служащие как бы опорой для отростков нейронов. Многочисленные отростки протоплазматических астроцитов заканчиваются на нейронах и на кровеносных капиллярах, где образуют сеть, в ячейках которой залегают нейроны. Эти отростки расширяются на концах, переходя в широкие ножки, которые, контактируя между собой, со всех сторон окружают кровеносные капилляры, покрывая около 80 % их поверхности (вокругсосудистая глиальная пограничная мембрана), и нейроны; не покрыты этой мембраной лишь участки синапсов. Отростки, достигающие своими расширенными окончаниями поверхности мозга, соединяясь между собой нексусами, образуют на ней сплошную поверхностную глиальную пограничную мембрану (рис. 28). К этой мембране прилежит базальная мембрана, отграничивающая ее от мягкой мозговой оболочки.

Волокнистые астроциты преобладают в белом веществе ЦНС. Это многоотростчатые (20–40 отростков) клетки, тела которых имеют размеры около 10 мкм. Отростки располагаются между нервными волокнами, некоторые отростки достигают кровеносных капилляров. В мозжечке присутствует еще одна разновидность астроцитов – крыловидные астроциты зернистого слоя коры мозжечка. Это клетки звездчатой формы с небольшим количеством крыловидных отростков, которые окружают базальный слой кровеносных капилляров и нервные клетки.
Олигодендроциты – это мелкие клетки овоидной формы (6–8 мкм) с крупным, богатым хроматином ядром, окруженным тонким ободком цитоплазмы, в которой находятся умеренно развитые органеллы. Олигодендроциты располагаются вблизи нейронов и их отростков. От тел олигодендроцитов отходит небольшое количество коротких конусовидных и широких плоских трапециевидной формы от ростков. Последние формируют миелиновый слой нервных волокон. Миелинобразующие отростки спирально накручиваются на аксоны. По ходу аксона миелиновая оболочка сформирована отростками многих олигодендроцитов, каждый из которых образует один межузловой сегмент. Между сегментами находится узловой перехват нервного волокна (перехват Ранвье), лишенный миелина. Олигодендроциты, образующие оболочки нервных волокон периферической нервной системы, называются нейролеммоцитами, или шванновскими клетками. Они выполняют барьерную и защитную функции, участвуют в обеспечении метаболизма нейронов и в образовании нервных волокон. Микроглия, составляющая около 5 % клеток глии в белом веществе мозга и около 18 % – в сером, состоит из мелких удлиненных клеток угловатой или неправильной формы, рассеянных в белом и сером веществе ЦНС (клетки Ортега). От тела клетки отходят многочисленные отростки различной формы, напоминающие кустики. Основание некоторых клеток микроглии как бы распластано на капилляре.
Нервные волокна.
Нервные волокна представляют собой отростки нервных клеток, окруженные оболочками, образованными олигодендроцитами. Различают безмиелиновые и миелиновые нервные волокна. У безмиелиновых нервных волокон отростки нейронов (осевые цилиндры) прогибают цитоплазматическую мембрану, олигодендроцита (нейролеммоцита), которая смыкается над ним (рис. 29). Между цитоплазматическими мембранами осевого цилиндра и олигодендроцита имеется узкий промежуток.

В одну шванновскую клетку погружено несколько нервных волокон, большинство из них полностью, так что каждое волокно имеет мезаксон, образованный дупликатурой клеточной оболочки нейролеммоцита (шванновской клетки). Некоторые волокна не покрыты со всех сторон шванновскими клетками и не имеют мезаксона. Группа безмиелиновых нервных волокон, связанных с одним нейролеммоцитом, покрыта эндоневрием, образованным базальной мембраной нейролеммоцита и тонкой сеточкой, состоящей из переплетающихся коллагеновых и ретикулярных микрофибрилл.
Миелиновые нервные волокна образуются благодаря тому, что в эмбриональном периоде нейролеммоцит спирально накручивается на осевой цилиндр (аксон) нервной клетки (рис. 30). Толстая и плотная миелиновая оболочка, богатая липидами, изолирует нервное волокно и предотвращает утечку тока (нервного импульса) из аксолеммы. Каждый нейролеммоцит окутывает только часть осевого цилиндра длиной около 1 мм, образуя межузловой сегмент миелинового волокна. На границе между двумя соседними нейролеммоцитами образуется сужение нервного волокна – узловой перехват нервного волокна (перехват Ранвье) шириной около 0,5 мкм, где миелиновая оболочка отсутствует. Здесь аксолемма (оболочка аксона) контактирует с соприкасающимися отростками нейролеммоцитов. Скорость проведения нервного импульса по различным волокнам колеблется от 0,5 до 120 м/с. Цитолемма нейронов отделена от цитолеммы глиоцитов заполненными жидкостью межклеточными щелями, ширина которых колеблется от 15 до 20 нм. Все межклеточные щели сообщаются между собой и образуют единое межклеточное пространство.

В зависимости от функции выделяют три основных типа нейронов: афферентные, ассоциативные и эфферентные. Чувствительные, рецепторные, или афферентные, нейроны (от лат. afferens – приносящий) проводят нервные импульсы от органов и тканей в мозг. Тела таких нейронов у человека лежат вне ЦНС. Как правило, это биполярные (ложноуниполярные) нейроны. Один из отростков, отходящих от тела чувствительной нервной клетки, следует на периферию и заканчивается тем или иным чувствительным окончанием – рецептором, который способен трансформировать энергию внешнего раздражения в нервный импульс. Второй отросток направляется в ЦНС – головной или спинной мозг.
По расположению различают следующие виды нервных окончаний – рецепторов:
- экстерорецепторы, воспринимающие раздражение внешней среды, расположены в наружных покровах тела, в коже и слизистых оболочках, в органах чувств;
- интерорецепторы получают раздражение главным образом при изменении химического состава внутренней среды (хеморецепторы) и давления в тканях и органах (барорецепторы, механорецепторы);
- проприорецепторы, или проприоцепторы, воспринимают раздражение в мышцах, сухожилиях, связках, фасциях, суставных капсулах и т. д.
В зависимости от характера раздражения выделяют терморецепторы, механорецепторы и ноцирецепторы. Первые воспринимают изменения температуры, вторые – различные виды механических воздействий (прикосновение к коже, ее сдавление), третьи – болевые раздражения. Среди нервных окончаний различают свободные, лишенные оболочек из глиальных клеток, и несвободные, или концевые, нервные тельца, содержащие наряду с окончанием нервного волокна, клетки нейроглии (рис. 31).
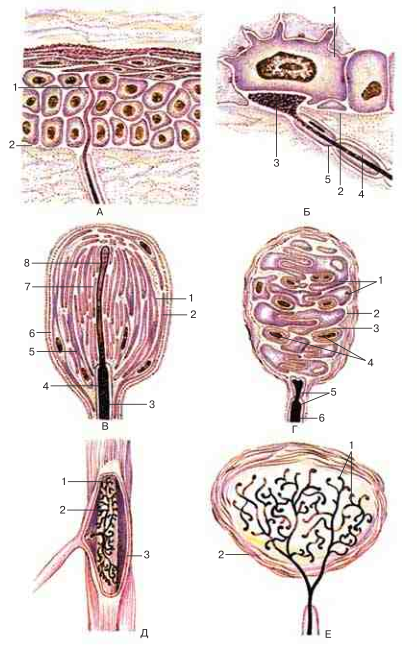
Свободные нервные окончания имеются в коже. Подходя к эпидермису, нервное волокно теряет миелин, проникает через базальную мембрану в эпителиальный слой, разветвляется между эпителиоцитами вплоть до зернистого слоя. Аналогичные концевые нервные окончания имеются в эпителии слизистой оболочки и роговицы глаза. Концевые свободные нервные окончания воспринимают боль, тепло и холод. Другие нервные волокна, имеющие свободные окончания, проникают в эпидермис, подходят к осязательным эпителиоцитам (клеткам Меркеля) и образуют с клеткой Меркеля синапсоподобный контакт. Эти окончания являются механорецепторами, воспринимающими давление.
Несвободные нервные окончания могут быть инкапсулированными (покрыты соединительнотканной капсулой) и неинкапсулированными (лишенные капсулы). Неинкапсулированные нервные окончания встречаются в соединительной ткани. К ним относятся также окончания в волосяных фолликулах. Инкапсулированными нервными окончаниями являются осязательные, пластинчатые и луковицеобразные тельца. К группе инкапсулированных нервных окончаний относятся концевые колбы (тельца Краузе), осязательные тельца, пластинчатые тельца, тельца Руффини.
Осязательные тельца (тельца Мейсснера) – мелкие (длина 50–160 мкм, ширина около 60 мкм), овальные или цилиндрические, особенно многочисленны в сосочковом слое кожи пальцев. Они имеются также в коже губ, краев век, наружных половых органов. Нервное волокно, входя в тельце, теряет миелин и оканчивается колбообразным расширением, которое образует синапсоподобный контакт. Периневрий переходит в окружающую тельце капсулу, образованную несколькими слоями эпителиоидных периневральных клеток. Осязательные (мейсснеровские) тельца являются механорецепторами, воспринимающими прикосновение, сдавление кожи.
Пластинчатые тельца (тельца Фатера–Пачини) – самые крупные из всех инкапсулированных нервных окончаний (рис. 32). Они имеют овальную форму, достигают 3–4 мм в длину и 2 мм в толщину, располагаются в соединительной ткани внутренних органов и в подкожной основе кожи, а также в адвентиции крупных сосудов, в брюшине, сухожилиях и связках. Тельце снаружи покрыто соединительнотканной капсулой, имею щей пластинчатое строение и богатой гемокапиллярами. Под соединительнотканной оболочкой лежит наружная луковица, состоящая из 10–60 концентрических пластинок, образованных уплощенными эпителиоидными клетками, соединенными между собой десмосомами и запирающими зонами. Войдя в тельце, нервное волокно теряет миелиновую облочку и формирует внутреннюю луковицу, образованную отростками шванновских клеток, разделенными радиальной щелью. Нервное волокно в луковице заканчивается колбообразным вздутием. Сдавление тельца передается нервному окончанию, в котором возникает нервный импульс.

Тельца Руффини (механорецепторы), веретенообразные, расположены в коже пальцев кисти и стопы, в капсулах суставов и стенках кровеносных сосудов. Каждое тельце окружено тонкой капсулой, образованной пластинками эпителиоидных периневральных клеток. Войдя в капсулу, нервное волокно теряет миелин и разветвляется на множество веточек, окруженных шванновскими клетками, которые заканчиваются колбообразными вздутиями. Тельца Руффини также воспринимают тепло и являются проприорецепторами.
Концевые колбы (колбы Краузе) расположены в коже, конъюнктиве глаз, слизистой оболочке полости рта. Сферические тельца окружены толстой соединительнотканной капсулой, богатой коллагеновыми волокнами и фибробластами. Войдя в капсулу, нервное волокно теряет миелиновую оболочку и разветвляется в центре колбы, образуя много веточек. Колбы Краузе воспринимают холод.
Проприорецепторы воспринимают сокращение мышц, натяжение сухожилий и суставных капсул. Они расположены в мышцах, сухожилиях и суставных сумках.
Нервно-мышечное веретено длиной около 2 мм и шириной в области экватора около 0,1 мм, образовано видоизмененными тонкими короткими мышечными волокнами и контактирующими с ними нервными окончаниями (рис. 33, А). В каждое веретено проникает миелиновое нервное волокно толщиной 10–20 мкм, которое делится на несколько веточек, направляю щихся к мышечным волокнам. Продольно расположенные нервно-мышечные веретена растягиваются вместе с мышцей и несут информацию о степени растяжения мышцы. Кроме чувствительной (афферентной) иннервации, мышечные волокна получают и эфферентную (двигательную) иннервацию. Ее осуществляют двигательные нейроны, аксоны которых заканчиваются на интрафузальных мышечных волокнах, образуя моторные бляшки, или кустиковые, окончания в виде сеточек. Одно волокно формирует либо моторные бляшки, либо кустиковидные окончания.
Сухожильные органы (органы Гольджи) расположены внутри сухожилий вблизи мышц. Их длина не превышает 1,5–2,0 мм, а толщина в области экватора – 0,1 мм. Сухожильный орган снаружи покрыт капсулой, состоящей из нескольких концентрических пластинок, каждая из которых образована плоскими эпителиоидными периневральными клетками. Со стороны мышцы в сухожильный орган внедряются пучки коллагеновых волокон, связанные с 8–10 экстрафузальными мышечными волокнами. В каждый сухожильный орган входит 1–2 толстых миелиновых нервных волокна диаметром 10–20 мкм. Они теряют миелин, делятся на несколько веточек, окруженных нейролеммоцитами, обвивают пучки мышечных волокон и заканчиваются пуговчатыми утолщениями. Коллагеновые волокна внедряются в разветвления нервного волокна.

Вставочный (замыкательный, ассоциативный, или кондукторный) нейрон осуществляет замыкание или передачу возбуждения с чувствительного «центростремительного» нейрона на двигательный или секреторный – «центробежный». Вставочные нейроны лежат в пределах ЦНС.
Тела эфферентных (эффекторных, двигательных, или секреторных) нейронов (от лат. efferens – выносящий) находятся в ЦНС или в симпатических и парасимпатических узлах. Аксоны эфферентных нейронов несут импульсы к рабочим органам (мышцам или железам), а также ко всем органам и тканям для иннервации (регуляции) обмена веществ. Выделяют нервные окончания аксонов эфферентных нейронов – двигательные и секреторные. Двигательные (моторные) оканчиваются на мышечных волокнах скелетных мышц, где они образуют нервно-мышечные концевые пластинки (см. рис. 33, А). Аксоны двигательных нейронов разветвляются, и каждый из них иннервирует большое количество мышечных волокон. Окончание одного двигательного нейрона и иннервируемое им поперечнополосатое мышечное волокно образуют двигательную единицу.
В области мышечного волокна аксон нервной клетки или его ветвь не имеет миелиновой оболочки и разветвляется на множество коротких веточек, заканчивающихся пуговчатыми окончаниями. Каждое нервное окончание прогибает сарколемму мышечного волокна. Между аксолеммой и сарколеммой лежит аморфный гликопротеиновый слой, который переходит в базальную мембрану мышечного волокна. Структура, соединяющая нервное окончание и мышечное волокно, называется синапсом. Аксомышечный синапс состоит из пресинаптической и постсинаптической мембран, разделенных синаптической щелью (рис. 33, Б).
Нервный импульс, достигающий концевой пластинки, вызывает выброс в синаптическую щель ацетилхолина, который связывается с рецепторами мембраны мышечного волокна, что приводит к открытию натриевого и калиевого каналов. Это обусловливает местную деполяризацию постсинаптической мембраны – возникает потенциал концевой пластинки, что способствует сокращению мышечного волокна. Рецепторы ацетилхолина находятся только в постсинаптической мембране. Действие ацетилхолина длится около 1–2 с, после чего он инактивируется ацетилхолинэстеразой. К пресинаптической мембране примыкает множество электронно-прозрачных синаптических пузырьков, содержащих ацетилхолин, а также митохондрии. Ширина синаптической щели равна 10–20 нм. Мембрана постсинаптического полюса формирует вторичные синаптические щели, заполненные мелкозернистым аморфным веществом. Для постсинаптической структуры характерно наличие большого количества митохондрий, но миофибриллы отсутствуют.
Нервные окончания гладкой мышечной ткани образуют вздутия, в которых также находятся синаптические пузырьки и митохондрии, содержащие норадреналин и дофамин. Большинство нервных окончаний и вздутий аксонов контактирует с базальной мембраной миоцита, лишь небольшое число их прободает базальную мембрану. В последних контактах аксолемма отделена от цитолеммы миоцита щелью толщиной около 10 нм.