
Миграция и взаимодействие иммунных клеток MALT
Защита слизистых оболочек и кожи
- Молекулы адгезии
- Хемокины
- Этапы миграции клеток из сосудистого русла в ткани
- Регуляция миграции клеток мукозальной иммунной системы
- Защитная функция секреторного IgА слизистых оболочек
Лимфоциты непрерывно перемещаются из кровотока в лимфатические узлы, селезенку или лимфоидную ткань, ассоциированную со слизистыми, а затем обратно в кровоток.
Этот круговорот лимфоцитов обозначают термином рециркуляция. В процессе рециркуляции лимфоциты покидают лимфоидные ор35 ганы с эфферентной лимфой (из селезенки они выходят с кровью) и через грудной лимфатический проток проникают в кровяное русло. Затем через посткапиллярные венулы клетки вновь попадают в лимфоидный орган (тот же или другой), внутри которого перемещаются в специфические места их локализации.
После этого клетки покидают орган и выходят в циркуляторное русло и т.д. Известно, что в крови лимфоциты находятся недолго (примерно 30 мин), но в течение суток многократно (4–5 раз) покидают циркуляторное русло и вновь в него возвращаются.
Способность клеток следовать по строго определенным маршрутам миграции, или хоминг, осуществляется с помощью контактных механизмов, обеспечиваемых молекулами адгезиии хемотаксиса, зависящего от вида экспрессируемых на клетках хемокиновых рецепторов. Термином хоминг (от англ. home – дом, homing – возвращаться домой) исходно обозначалась способность циркулирующих лимфоцитов возвращаться из кровотока в лимфоидные органы. В настоящее время этим термином обозначают предпочтительную миграцию клеток из кровотока в конкретные ткани в ответ на образование в зонах хоминга специфических факторов.
Молекулы адгезии
Молекулы адгезии представлены четырьмя семействами: селектинами, интегринами, молекулами суперсемейства иммуноглобулинов и кадхеринами. Основную роль при осуществлении миграции и взаимодействии миелоидных и лимфоидных клеток играют представители первых трех семейств. Молекулы адгезии одних семейств могут взаимодействовать с молекулами других семейств как рецепторы и лиганды.
Селектины. Могут экспрессироваться на лейкоцитах, в этом случае они называются L-селектины (от англ. Lymphocyte – лимфоцитарный), на эндотелии – Е-селектины (от англ. Endothelial – эндотелиальный), а также на тромбоцитах – Р-селектины (от англ. Platelet – тромбоцитарный) (табл. 2). L-селектин (CD62L) спонтанно экспрессируется на поверхности нейтрофилов, моноцитов и лимфоцитов. Рецепторами L-селектинов служат вещества, называемые адрессинами. L-селектин формирует слабую связь с адрессинами и к тому же легко смывается с поверхности клеток, поэтому опосредованный L-селектином контакт между лейкоцитом и эндотелиальной клеткой неустойчив. Это обеспечивает возможность лейкоцитам катиться по внутренней поверхности сосуда (rolling).
Таблица 2. Молекулы адгезии, принимающие участие в миграции и взаимодействии иммунных клеток
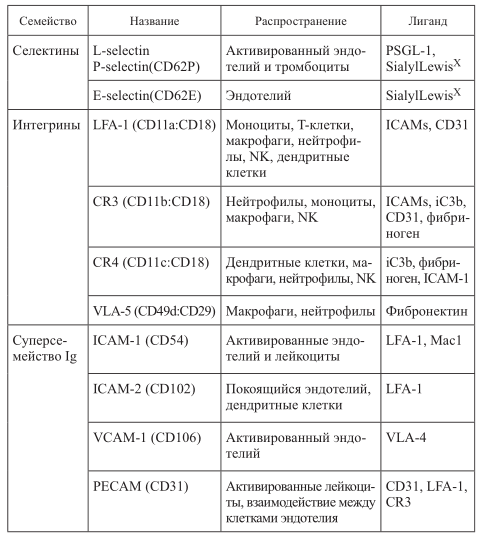
Е-селектин (CD62E) – основной селектин эндотелия сосудов. Под влиянием активирующих воздействий (особенно провоспалительных цитокинов) экспрессия Е-селектина на поверхности клеток резко усиливается и способствует миграции лейкоцитов из сосудистого русла в ткань, что необходимо на ранних этапах развития воспаления.
Р-селектин (CD62P) содержится в секреторных гранулах эндотелиальных клеток и тромбоцитов. При активации эндотелиальных клеток он быстро мобилизуется на поверхность клетки. Р-селектин участвует в активации тромбоцитов и в процессах, обеспечивающих миграцию лейкоцитов в очаг воспаления на ранних этапах.
Интегрины. Представляют собой большое семейство молекул, которые опосредуют адгезию между клетками, а также между клетками и экстрацеллюлярным матриксом. В отличие от селектинов интегрины экспрессируются главным образом на иммунных клетках, а не на эндотелии. Молекула интегринов содержит большую α-цепь, которая нековалентно связана с меньшей β-цепью (β 1 -, β 2 — или β 7 -). Семейство интегринов в настоящее время делят на три субсемейства в зависимости от варианта β-цепи: субсемейство VLA (β 1 -интегрины), субсемейство лейкоцитарных интегринов (β 2 -интегрины) и β 7 -субсемейство.
Существует три варианта номенклатуры интегринов: традиционные обозначения, обычно связанные с особенностями функции данного интегрина, структурные – содержащие греческие названия полипептидных цепей, образующих данную молекулу, и CD-номенклатура. Например, LFA-1 (Lymphocyte functional antigen 1) обозначается также как α L β 2 -интегрин, или CD11a:CD18; VLA-4 (Very late activation antigen 4) имеет синонимы α 4 β 1 -интегрин и CD49d:CD29.
β 2 -интегрин LFA-1 экспрессируют все лейкоциты и дендритные клетки. Он является лигандом ICAM-1, -2, -3. Экспрессия β 1 -интегрина VLA значительно усиливается в позднюю стадию активации Т-клеток. VLA является лигандом молекул VCAM-1, которые экспрессирует активированный эндотелий, обеспечивая миграцию эффекторных Т-клеток в место инфекции.
Суперсемейство иммуноглобулинов. Включает несколько групп молекул, имеющих сходное строение: собственно иммуноглобулины (Ig), антигенспецифический рецептор Т-лимфоцитов, инвариантные домены молекул MHC, CD4, CD8, CD19, а также адгезины. К последней группе принадлежат молекулы адгезии эндотелиальных клеток, в том числе молекулы ICAM первого (от англ. Inter Cellular Adhesion Molecules – ICAM-1, или CD54), второго (ICAM-2, или CD102) и третьего типов (ICAM-3), а, кроме того, молекулы адгезии сосудистого эндотелия VCAM1 (от англ. Vascular Cellular Adhesion Molecules).
На эндотелиальных клетках они являются поверхностными лигандами для интегринов LFA-1 и VLA-4. Особенности экспрессии ICAM-1, -2, -3 и VCAM-1 играют важную роль в регуляции экстравазации лимфоцитов. На покоящихся эндотелиальных клетках выявляется стабильно высокий, не зависящий от активации, уровень экспрессии ICAM-2. Наоборот, ICAM-1 плохо экспрессируется на покоящихся эндотелиоцитах, а VCAM-1 просто отсутствует. При активации эндотелия экспрессия ICAM-1 и VCAM-1 быстро усиливается; ICAM-1 и ICAM-2 экспрессируются на эндотелии и антигенпрезентирующих клетках; ICAM-3 экспрессируется только на наивных Т-клетках и играет важную роль в активации последних, поскольку лигандом ICAM-3 является LFA-1 – молекула адгезии дендритной клетки.
Молекула адгезии PECAM-1 (или CD31), также принадлежащая семейству иммуноглобулинов, исполняет роль линкерной (от англ. link – связывать, соединять) молекулы для эндотелиальных клеток, а также экспрессируется на некоторых лейкоцитах.
Кадхерины – это семейство трансмембранных кальцийзависимых гликопротеинов, осуществляющих адгезивные межклеточные контакты и не имеющих отношения к миграции иммунных клеток. Большинство кадхеринов функционирует в качестве трансмембранных линкерных белков, опосредующих взаимодействия между актиновыми цитоскелетами соседних клеток ткани. Они подразделяются на эпителиальные (Е-кадхерины), нервные (N-кадхерины) и плацентарные (Р-кадхерины). Е-кадхерины обычно обнаруживаются на поверхности зрелых эпителиальных клеток, в местах контакта с другими эпителиоцитами. С актиновым цитоскелетом собственной клетки кадхерины взаимодействуют через белок катенин. Взаимодействие кадхеринов и катенинов играет важную роль в процессах контактного ингибирования пролиферации, регуляции апоптоза, формообразовании клеток.
Хемокины
Хемокины (от англ. Chemotactic cytokines) – специальная разновидность цитокинов, контролирующих процессы миграции и активации клеток иммунной системы. Мигрирующие клетки движутся соответственно градиенту концентрации хемокина по направлению к его источнику. Продуцентами хемокинов являются лейкоциты, тромбоциты, фибробласты, эпителиальные и эндотелиальные клетки и др.
За последние несколько лет идентифицировано около 40 хемокинов, которые в зависимости от положения в полипептидной молекуле первых двух цистеиновых остатков (С) и количества разделяющих их от других аминокислот (Х) разбиты на четыре семейства.
К семейству α-хемокинов (СХС) относятся ИЛ-8, GROα, β, γ, IP-10. Эти хемокины участвуют в регуляции острого воспалительного ответа и являются сильными хемоаттрактантами для нейтрофилов. К β-хемокинам (СС) принадлежат RANTES, MIP-1, MCP-1, 2, 3, 4 и др. Молекулы этого семейства больше задействованы в формировании хронического воспаления.
Представителем группы γ-хемокинов (С) является лимфотактин – фактор, регулирующий миграцию и адгезию Т-лимфоцитов и NK-клеток и не влияющий на макрофаги и нейтрофилы. Аналогичным действием обладает фракталкин, относящийся к δ-хемокинам (СХХХС). В специальной литературе для обозначения хемокинов принята следующая номенклатура: после названия семейства хемокина следует буква L (от англ. Ligand) и число, обозначающее конкретный хемокин из данного семейства, например интерлейкин-8 называется CXCL8.
При описании хемокиновых рецепторов после названия семейства хемокина-лиганда этого рецептора следует буква R (от англ. Receptor) и число, например рецепторы интерлейкин-8 носят названия CXCR1 и CXCR2. По функциям хемокины условно подразделяют на гомеостатические и провоспалительные.
Гомеостатические хемокины секретируются постоянно, обычно стромальными и эндотелиальными, иногда дендритными клетками, реже – самими лимфоцитами. Определяют миграцию клеток иммунной системы в процессе их созревания, в частности направление миграции ДК на разных этапах их созревания: сначала – движение клеток из кровотока в барьерные ткани, а затем – перемещение в Т-зоны региональных лимфатических узлов. В лимфоидных органах разные участки стромы секретируют гомеостатические хемокины, что определяет их заселение разными типами лимфоцитов (Т-зоны – Т-клетками, а фолликулярные зоны – В-клетками). Это обеспечивает стабильность состава лимфоидных органов при непрерывной рециркуляции лимфоцитов.
Провоспалительные хемокины отвечают за активацию клеток и привлечение их в очаг воспаления. Выделяются многими клетками в ответ на бактериальную инфекцию, вирусы или другие повреждающие агенты (например, кристаллы мочевой кислоты, образующиеся при подагре). Секреция хемокинов этой группы стимулируется провоспалительными цитокинами, такими, например, как интерлейкин-1.
Этапы миграции клеток из сосудистого русла в ткани
Клетки иммунной системы постоянно перемещаются из сосудистого русла в ткани, часть из них через некоторое время возвращается в кровь. Выходят клетки в ткани в области посткапиллярных венул, причем только в том случае, если их эндотелий активирован (высокий эндотелий).
Конституционно высокий эндотелий имеется в венулах лимфоидных органов, в сосудах других органов активированный эндотелий появляется только под воздействием провоспалительных цитокинов. Миграция клеток из сосудистого русла (экстравазация) в ткани осуществляется в несколько этапов: пристеночное качение клеток, активация интегринов, прочная адгезия к эндотелию, миграция через эндотелий и базальную мембрану (диапедез), движение лейкоцитов в тканях. Каждый этап осуществляется благодаря координированному взаимодействию различных адгезивных молекул и хемокинов.
Начальный этап миграции обусловлен взаимодействием мембранного L-cелектина (CD62L) лейкоцитов с адрессинами эндотелиальных клеток – GlyCAM-1 и CD34, экспрессируемыми высоким эндотелием венул лимфатических узлов, и MadCAM-1, экспрессируемым эндотелием сосудов лимфоидной ткани кишечника. L-cелектин действует как хоуминг-рецептор наивных лимфоцитов (активированные клетки его не экспрессируют), а также нейтрофилов, моноцитов и эозинофилов. Взаимодействие L-cелектина и его лигандов слабое, легко нарушается, что обусловливает феномен качения – лейкоцит касается эндотелия и катится вдоль сосудистой стенки.
Еще одна молекула адгезии, принимающая участие в первом этапе миграции клеток из сосудистого русла, – это сиалированный олигосахарид SialylLewis X (SLe X ), который экспрессируют гранулоциты и моноциты. На поверхности Т- и В-лимфоцитов SLe X появляется только после активации. Лигандами SLe X являются Е-селектин и Р-селектин, которые экспрессируются на эндотелии в местах проникновения инфекции и необходимы для привлечения в инфицированную ткань эффекторных иммунных клеток. Связи между SialylLewis X и их лигандами непрочные и опосредуют начальную фазу (качение) воспалительной экстравазации клеток.
Для реализации следующего этапа (плотной адгезии лейкоцитов к эндотелию) необходима активация экспрессии лейкоцитарных β 2 -интегринов. Этот процесс индуцируется хемокинами, синтезируемыми стромальными клетками лимфатических узлов и высоким эндотелием. В результате лейкоцитарные LFA-1 и СR3 прочно связываются с эндотелиальными молекулами ме жклеточной адгезии ICAM-1 и ICAM-2. Экспрессия ICAM-1 значительно усиливается под влиянием провоспалительных цитокинов, таких как TNF-α и ИЛ-1. ICAM-2 в отличие от ICAM-1 присутствует на покоящихся эндотелиальных клетках. Далее под влиянием хемотаксических сигналов, поступающих из тканей, лейкоцит продолжает движение, проникая сначала между эндотелиальными клетками, а затем – через базальную мембрану. Такой процесс называется диапедезом клеток. На этом этапе, кроме LFA-1, СR3 и их лигандов, прочно удерживающих клетки на месте, в процесс вовлекаются молекулы адгезии PECAM-1, скрепляющие между собой эндотелиальные клетки, а также экспрессируемые активированными лейкоцитами. Благодаря этим молекулам лейкоциты «протискиваются» в щели между эндотелиоцитами поскапиллярных венул. Рассоединение межклеточных контактов напоминает процесс открытия замка-молнии. Чтобы проникнуть через базальную мембрану, мигрирующие клетки выделяют металлопротеиназы, лизирующие коллаген и другие компоненты мембраны.
Финальным этапом экстравазации является миграция лейкоцитов в тканях под влиянием хемокинов, синтезируемых вторичной лимфоидной тканью. Хемокины фиксируются в межклеточном матриксе и формируют химический градиент, который определяет направление движения мигрирующих клеток.
Регуляция миграции клеток мукозальной иммунной системы
Наивные Т-лимфоциты покидают тимус, В-лимфоциты и незрелые дендритные клетки – костный мозг и попадают в кровоток, а оттуда через высокий эндотелий поскапиллярных венул – в различные ткани. Этот процесс регулируют хемокины и тканеспецифичные молекулы адгезии.
Незрелые дендритные клетки благодаря хемокиновым рецепторам CCR1, CCR2, CCR5, CCR6, CXCR1 и CXCR2 мигрируют из крови преимущественно в слизистые оболочки и кожу или прямо в периферические лимфоидные органы в ответ на хемокины, выделяемые этими органами. Так, например, эпителиальные клетки кишечника выделяют хемокины ССL20 и CCL9, которые являются лигандами рецепторов CCR6 и CCR1 соответственно, экспрессируемых ДК, в слизистой оболочке которых локализуются как диффузно, так и в лимфатических фолликулах. Большинство незрелых ДК собственной пластинки слизистых оболочек экспрессируют интегрин α Е :β 7 (CD103).
Взаимодействуя в барьерных тканях с патогенами, ДК поглощают их и под влиянием провоспалительных цитокинов мигрируют в тканевую жидкость, а затем – в лимфу, где приобретают характерную форму вуалевых клеток и изменяют свой фенотип: на их поверхности появляются β 1 -интегрины, хемокиновый рецептор CCR7, а также усиливается экспрессия костимулирующих молекул В7 (CD80 и CD86) и молекул MHC II, презентирующих белки процессированного патогена. С током афферентной лимфы ДК мигрируют в Т-зоны региональных лимфатических узлов, куда их привлекают лиганды рецептора CCR7 – хемокины CCL19 и CCR21, секретируемые стромальными клетками Т-зон лимфатического узла. Оказавшись в Т-зоне, ДК превращаются в зрелые интердигитальные клетки, которые перестают экспрессировать рецептор CCR7 и начинают продуцировать хемокины CCL21, CCL19 и CCL18. С помощью этих хемокинов ДК привлекают в лимфоузел как незрелые ДК, пополняющие популяцию интердигитальных клеток, так и наивные Т-лимфоциты, несущие на своей поверхности рецептор CCR7.
Циркулирующие в крови наивные В-клетки экспрессируют рецептор СХСR5, реагирующий на хемокин CXCL13, который секретируют стромальные клетки и фолликулярные ДК фолликулярных зон лимфатических узлов.
Таким образом, взаимодействие описанных хемокинов со специфическими к ним рецепторами определяет направление миграции ДК, наивных Т- и В-лимфоцитов в соответствующие зоны лимфатических узлов и обеспечивает презентацию ДК антигенов в комплексе с молекулами MHC. Непосредственный контакт Т-клеток с ДК осуществляется благодаря молекулам адгезии, которые экспрессируют эти клетки. Так ICAM-1, ICAM-2 и LFA3 (CD58) ДК связываются соответственно с LFA-1 и LFA2 (CD2) наивных Т-клеток.
Наивным В-лимфоцитам, находящимся в фолликулярной зоне лимфоидного органа, антиген презентируют фолликулярные дендритные клетки или макрофаги. Контакт с антигеном служит первым сигналом, необходимым В-клеткам для активации и последующей дифференцировки в плазматические клетки. Однако полная дифференцировка лимфоцитов как в IgА продуцирующие плазматические клетки, так и в эффекторные Т-клетки происходит, когда они возвращаются в Lamina propria.
Активация лимфоцитов, возникающая в результате контакта с антигенами (праймирование), приводит к существенному изменению спектра экспрессируемых ими молекул адгезии и хемокиновых рецепторов: T- и В-клетки теряют с поверхности L-селектин и CCR7, но начинают экспрессировать интегрин α 4 :β 7 и хемокиновый рецептор CCR9 или ССR10. Если лимфоцит был праймирован антигеном в тонком кишечнике, то он будет экспрессировать CCR9, если в толстом – ССR10.
Праймированные Т- и В- лимфоциты выходят из пейеровых бляшек, по дренирующему лимфатическому протоку поступают в мезентериальные лимфатические узлы, из них – в грудной лимфатический проток, а далее – в кровоток. Утрата L-селектина и CCR7 делает невозможным для этих клеток возврат во вторичные лимфоидные органы. Лигандом для рецептора CCR9 является хемокин CCL25, продуцируемый только эпителием тонкого кишечника. Соответственно, лимфоциты, праймированные в лимфоидных органах тонкого кишечника, мигрируют в слизистую тонкого кишечника. Слизистые толстого кишечника, лактирующих молочных желез и слюнных желез экспрессируют CCL28, который является лигандом для CCR10 и привлечет в эти ткани лимфоциты, праймированные в лимфоидных органах толстого кишечника.
До настоящего времени не выявлены строго специфичные хемокины и их рецепторы, обеспечивающие узконаправленную миграцию лимфоцитов в слизистые оболочки респираторного и урогенитального трактов. Однако известно, что важную роль в привлечении эффекторных Т-клеток в эпителий слизистых оболочек, включая слизистые дыхательных путей, играет хемокин CCL5 (RANTES), который является лигандом рецепторов CCR5, экспрессируемых эффекторными лимфоцитами.
Функцию проводников эффекторных Т-клеток через сосудистую стенку в слизистые оболочки, а не в лимфоидные органы, выполняют интегрины α 4 β 1 (VLA-4), α E β 7 и α 4 β 7 , для В-лимфоцитов – α 4 β 1 и α 4 β 7 . При этом интегрины α 4 β 1 и α E β 7 обеспечивают поступление лимфоцитов в любые слизистые оболочки, тогда как интегрин α 4 β 7 направляет Т-клетки и В-клетки именно в слизистые тонкого кишечника. Такая избирательная миграция связана с распределением рецепторов упомянутых интегринов. Если рецепторы VCAM-1 и Е-селектин для интегринов α 4 β 1 и α E β 7 соответственно содержатся на эндотелиальных клетках сосудов всех типов слизистых оболочек, то рецептор для интегрина α 4 β 7 (адрессин MadCAM) присутствует преимущественно на клетках эндотелия в сосудах кишечника. Некоторые мигрировавшие из сосуда в ткань лимфоциты (преимущественно CD8+Т-клетки), оказавшиеся в непосредственной близости к эпителиальному слою слизистой оболочки, вместо интегрина α 4 β 7 начинают экспрессировать α Е β 7 (CD103).
Интегрин α Е β 7 взаимодействует с Е-кадхерином эпителиоцитов кишечника, что способствует удержанию мигрировавших Т-киллеров непосредственно в эпителии. Миграция лимфоцитов в слизистые оболочки усиливается при воспалительной реакции, когда происходит активация эндотелия сосудов, расположенных в области очага воспаления.
При этом на клетках эндотелия усиливается экспрессия молекул адгезии ICAM-1, VCAM-1, MadCAM и Р-селектина. Одновременно увеличивается выработка хемокинов, в частности ССL5 (RANTES) и CCL2 (MCP-1). Эти молекулы привлекают лимфоциты, несущие рецепторы CCR5 и CCR2.
Следует отметить, что активированные лимфоциты мигрируют предпочтительно в те лимфоидные ткани, из которых происходят премировавшие их дендритные клетки. Так, если это были дендритные клетки Lamina propria слизистой тонкого кишечника, экспрессирующие α Е :β 7 , то они стимулировали бы экспрессию на Т- и В-клетках молекул кишечного хоминга CCR9 и α 4 :β 7 . Дендритные клетки лимфоидной ткани кожи в процессе праймирования лимфоцитов индуцируют экспрессию интегрина α 4 β 1 , CLA (Cutaneous Lymphocyte Antigen) и хемокинового рецептора CCR4, которые направляют эффекторные лимфоциты в кожу.
Лимфоидная ткань слизистой оболочки кишечника находится на особом положении, поскольку обеспечена как общими для всех слизистых молекулами хоминга и хемокиновыми рецепторами, так и специфичными, избирательно экспрессирующимися только в кишечнике молекулами этих групп. В результате все лимфоциты, способные мигрировать в слизистую оболочку кишечника, могут мигрировать в любые другие слизистые оболочки, но только малая часть лимфоцитов из других слизистых оболочек способна попасть в слизистую оболочку кишечника. Так, лимфоциты, праймированные в кишечнике, могут рециркулировать и попадать, например, в слизистые респираторного или урогенитального трактов, в лактирующие молочные железы и там осуществлять защитную функцию. Это еще раз подтверждает идею существования общей мукозальной иммунной системы.
Защитная функция секреторного IgА слизистых оболочек
В организме человека IgA существует в двух формах – мономерной и димерной. IgА сыворотки крови представлен, главным образом, мономерной формой. Иммуноглобулин в такой форме продуцируется плазматическими клетками костного мозга, предшественниками которых являются активированные в лимфатических узлах В-лимфоциты. Плазматические клетки слизистых оболочек секретируют IgA в форме димера, в котором мономерные молекулы объединены J-цепью.
Переключение В-лимфоцитов на синтез IgA в кишечнике является Т-зависимым процессом, контролируется цитокином TGF-β и осуществляется только в организованной лимфоидной ткани. Иммуноглобулин А, секретируемый плазматическими клетками в субэпителиальное пространство, выполняет свою защитную функцию как в собственной пластинке слизистой, так и в просвете кишечника. В просвет кишечника IgA особым образом транспортируется через эпителий. На базальной поверхности эпителиальных клеток слизистых присутствуют так называемые полимерные иммуноглобулиновые рецепторы (рIgR), имеющие высокое сродство к J-цепи полимерных иммуноглобулинов, таких как димер IgA или пентамер IgМ. После связывания димера IgA с pIgR образовавшийся комплекс интернируется эпителиальной клеткой и транспортируется в составе везикулы от базальной к противоположной, обращенной в просвет кишечника, апикальной мембране.
В процессе транспортировки специальные протеолитические ферменты отщепляют большую часть рецептора pIgR, непосредственно связанную с иммуноглобулином. Часть рецептора, оставшаяся в комплексе с иммуноглобулином, называется секреторным компонентом (SC – secretory component). Иммуноглобулин А с секреторным компонентом называется секреторный IgA (sIgA). При достижении апикальной поверхности клетки содержимое везикулы, включая sIgA, выбрасывается в просвет органа путем экзоцитоза. Углеводная часть секреторного компонента сразу связывается с муцином слизи, секретируемой эпителиоцитами, что позволяет удерживать IgA на поверхности эпителия. Присутствие SC-цепи в составе sIgA также придает молекуле иммуноглобулина устойчивость к действию протеаз, присутствующих в среде (особенно в пищеварительном тракте).
Иммуноглобулин А, синтезируемый в слизистых оболочках, выполняет ряд важных функций. В просвете кишечника sIgA может связывать молекулы адгезии бактерий и тем самым препятствовать прикреплению микроорганизмов к эпителиальному слою и проникновению их внутрь. Кроме того, IgA может связывать бактериальные токсины и вирусы, проникшие внутрь эпителиальной клетки или попавшие в Lamina propria. Образовавшийся комплекс антиген–антитело реэкспортируется в просвет кишечника. Секреторный IgA обладает очень низкой способностью активировать комплемент по классическому пути в неэффективный опсонин, а поэтому не индуцирует развитие воспаления. В результате, проникновение небольшого количества микроорганизмов через эпителиальный барьер не сопровождается риском воспалительного повреждения слизистой.