
Формирование BCR и селекция В-лимфоцитов
- Строение BCR
- Формирование гена BCR
- Селекция В-лимфоцитов
У человека дифференцировка В-лимфоцитов осуществляется в костном мозге. Основным этапом в процессе формирования В-лимфоцитов является перестройка зародышевых генов в зрелые, кодирующие специфичный для каждого В-лимфоцита В-клеточный рецептор.
Строение BCR
Мембранный рецептор В-лимфоцитов по своей природе является иммуноглобулином. Главная его функция – распознавание и связывание соответствующего антигена, что в конечном итоге приводит к активации В-лимфоцита и продукции им иммуноглобулинов такой же специфичности. Зрелые наивные В-клетки экспрессируют на своей поверхности IgM и IgD. Смена класса рецептора с IgM на IgG, IgE или IgA происходит после встречи с антигеном в процессе иммунного ответа. Свободные иммуноглобулины, секретируемые плазматическими клетками, называют антителами.
Молекула иммуноглобулина имеет Y-образную форму и состоит из двух идентичных легких (L) и двух идентичных тяжелых (H) цепей, связанных между собой дисульфидными связями. Каждая цепь в свою очередь состоит из достаточно автономных участков – V- и C-доменов. V-домены обладают очень высокой вариабельностью. Комбинация V-доменов одной L-цепи и одной H-цепи формирует антигенсвязывающий участок (Fab – от англ. antigen-binding fragment – антигенсвязывающий фрагмент). Молекула иммуноглобулина состоит из двух пар цепей, поэтому в каждой молекуле будет по два одинаковых антигенсвязывающих участка, которые формируют V-регион (от англ. variable-region), характеризующийся высокой вариабельностью и отвечающий за связывание антигена.
C-домены (3–4 домена в тяжелой цепи и только 1 домен – в легкой) имеют относительно постоянные аминокислотные последовательности и называются константными – Fc-фрагмент (от англ. constant fragment – постоянный фрагмент). С-домены расположены в основании молекулы иммуноглобулина – С-регионе (от англ. constant-region), который выполняет эффекторную функцию при реализации иммунного ответа. Посредством С-доменов происходит связывание Ig со специализированными тканевыми рецепторами (FcRs) на мембранах эффекторных клеток либо с эффекторными молекулами (например, компонентами комплемента). В-клеточный рецептор, являющийся иммуноглобулином, связан с мембраной В-лимфоцита и не выполняет эффекторной функции, поскольку его С-регион погружен в мембрану клетки.
Существует пять основных изотипов H-цепей (μ, δ, γ, ε, α) и два изотипа L-цепей (κ и λ). В зависимости от изотипа тяжелых цепей, представленных в молекуле иммуноглобулина, выделяют пять основных вариантов С-регионов и соответственно пять классов иммуноглобулинов. Греческие буквы изотипов H-цепей μ, δ, γ, ε, α соответствуют латинским буквам, которыми обозначают класс иммуноглобулина, – IgM, IgD, IgG, IgE и IgA. С-регионы этих классов иммуноглобулинов обеспечивают активацию разных эффекторных механизмов. L-цепи в иммуноглобулине, представляемые κ- или λ-изотипами, не влияют на функциональные особенности разных классов антител.
Формирование гена BCR
Чтобы понять природу разнообразия антигенраспознающих структур, следует обратить внимание на особенности генетической детерминации этих молекул. Кластеры генов, кодирующие легкие и тяжелые цепи иммуноглобулинов, расположены на разных хромосомах (2, 22, 14) и носят название V, D, J, C. Легкие цепи кодируют V-, J-, C-гены, тяжелые цепи – V-, D-, J-, C-гены. Вариабельную антигенсвязывающую часть рецептора кодируют гены V, D, J. Ген С кодирует константную часть рецептора, изменчивость которой существенно меньше. Каждый из генов V, D, J, C, кодирующих легкие и тяжелые цепи B-клеточного рецептора, имеет по несколько аллельных вариантов (табл. 7), поэтому один и тот же участок рецептора может быть закодирован разными аллелями, незначительно различающимися по последовательности нуклеотидов.
Таблица 7. Количество аллельных вариантов генов в кластерах, кодирующих легкие и тяжелые цепи иммуноглобулинов
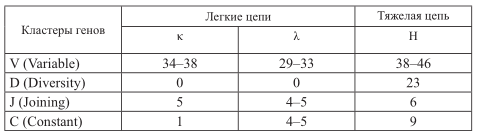
В процессе созревания про-В-лимфоцита из каждого кластера генов случайным образом выбирается только один аллельный вариант, а затем выбранные аллели последовательно «сшиваются». Этот механизм, при представленном в табл. 7 полиморфизме, обеспечивает формирование всего 10 6 вариантов BCR. Ген TCR формируется подобным образом, но количество возможных сочетаний V-, D-, J-, C-генов при этом несколько больше – 6⋅106.
Однако даже такое количество вариантов рецепторов не в состоянии обеспечить ответ на все разнообразие антигенов. Поэтому существует еще один механизм, значительно увеличивающий количество возможных вариантов рецепторов: из вновь сформированного гена BCR в случайно выбранном месте удаляется небольшой участок. В результате этого процесса происходит сдвиг рамки считывания. Как известно, рецептор – это белок, представляющий собой определенную последовательность аминокислот, которую в ДНК кодирует соответствующая последовательность нуклеотидов. Три последовательно расположенных нуклеотида (триплет) кодируют одну аминокислоту, и выпадение даже одного из нуклеотидов в первой тройке приведет к полному изменению последовательности нуклеотидов в каждом последующем триплете. Таким образом, случайное удаление оснований приводит к сдвигу рамки считывания, при этом образуются уже совершенно иные комбинации нуклеотидов в триплетах, и значит будут кодироваться совершенно другие аминокислоты. После того как произошла случайная вырезка, ген, кодирующий BCR, больше не меняется до достижения В-лимфоцитом зрелости. В результате сдвига рамки считывания возможное разнообразие рецепторов иммуноглобулинов значительно увеличивается и достигает 5⋅1013 .
Это огромное количество, которое теоретически может взаимодействовать с любым антигеном. Описанные механизмы позволяют обеспечить универсальность иммунного ответа. Следует также обратить внимание на то, что процесс формирования рецепторов лимфоцитов идет абсолютно случайным образом и не зависит от того, с какими антигенами встречалась иммунная система.
Поскольку генетический код антигенраспознающих рецепторов формируется по воле случая, а возможное количество их вариантов огромно, то логично предположить, что эти рецепторы будут проявлять:
- специфичность к экзогенным антигенам, например инфекционным, – лимфоцитам с такими рецепторами с большой вероятностью найдется полезное применение;
- специфичность к эндогенным антигенам – появятся потенциальные родоначальники аутореактивных клонов клеток, способных вызвать аутоиммунное заболевание.
Возможен также вариант, когда в природе не существует лигандов к вновь сформированному рецептору. В результате пролиферации лимфоцитов с такими рецепторами будут образовываться клоны бесполезных клеток. И, наконец, в результате случайности могут сформироваться дефектные рецепторы, неспособные взаимодействовать с антигенами. Лимфоциты с такими рецепторами также могут образовывать клоны бесполезных клеток.
Селекция В-лимфоцитов
Формирующиеся случайным образом рецепторы смогут связывать не только чужеродные антигены, но и антигены собственных тканей организма, что и является первопричиной аутоиммунных заболеваний. Можно сказать, что аутоиммунные заболевания – это своего рода расплата за универсальность иммунного ответа, которую дарит случайность. Однако в организме человека существует специальный защитный механизм, способствующий удалению как аутореактивных, так и бесполезных клонов лимфоцитов. Этот механизм называется селекцией. Осуществляется селекция лимфоцитов в два этапа:
- центральная селекция происходит в костном мозге (для В-лим фоцитов) и тимусе (для Т-лимфоцитов);
- периферическая селекция начинается после того, как лимфоциты покидают центральные органы иммунной системы.
Центральная селекция В-клеток. Предшественники В-лимфоцитов образуются в костном мозге из гемопоэтической стволовой клетки. Здесь пре-В-лимфоциты формируют свой антигенраспознающий рецептор (IgM), экспрессируют его на поверхности и становятся незрелыми В-лимфоцитами. Далее в процессе созревания эти клетки тестируются на способность реагировать с собственными антигенами, т.е. на аутореактивность. Микроокружение костного мозга, стромальные клетки, плотно контактирующие с развивающимися лимфоцитами, создают условия и обеспечивают сигналы для созревания В-лимфоцитов. Так, незрелые В-лимфоциты, слабо взаимодействующие с какими-либо антигенами на стромальных или других клетках костного мозга, а также лимфоциты, вообще не взаимодействовавшие с антигенами микроокружения костного мозга, продолжают процесс созревания и покидают костный мозг. Если же вновь образованный рецептор незрелого В-лимфоцита сильно взаимодействует с собственными антигенами, представленными микроокружением костного мозга, то клетка с таким рецептором прекращает процесс созревания и погибает. Данным способом удаляются явно аутореактивные В-лимфоциты. Однако центральная селекция не идеальна, и некоторые аутореактивные клоны В-лимфоцитов все-таки могут выходить из костного мозга и попадать на периферию. Следующий этап селекции идет на периферии.
Периферическая селекция В-лимфоцитов. Наивный В-лимфоцит, несущий на своей поверхности IgM и IgD (функция последнего не совсем понятна), попадает в кровоток, а оттуда через эндотелий посткапиллярных венул – в периферические лимфоидные органы, в частности в лимфатические узлы.
Такое направление движения обусловлено тем, что наивный В-лимфоцит экспрессирует специальные рецепторы к молекулам адгезии эндотелия сосудов лимфатических органов (этапы экстравазации и необходимые для этого молекулы адгезии описаны в теме, посвященной защитной системе слизистых оболочек и кожи). Таким образом, наивная В-клетка из кровотока может попасть только в MALT или лимфатический узел, в котором находятся скопления дендритных клеток и макрофагов, мигрирующих сюда из слизистых оболочек и тканей после фагоцитоза патогенов, проникших в организм. Основной функцией ДК и МФ в лимфатическом узле является презентация ранее фагоцитированных антигенов лимфоцитам. Длительность жизни наивного В-лимфоцита – 4–6 дней. В течение этого времени клетки рециркулируют из лимфы в кровь и опять в лимфоидные органы, пока не встретят специфичный к своим рецепторам антиген. После встречи с антигеном лимфоцит прекращает рециркуляцию, получает сигнал к пролиферации и дифференцировке и одновременно утрачивает возможность входить в лимфатический узел через высокий эндотелий, поскольку изменяются экспрессируемые им рецепторы. Наивный В-лимфоцит, не нашедший свой антиген за отведенный период, погибает, поскольку с большой вероятностью он бесполезный или аутореактивный. Другой защитный механизм срабатывает, если наивный В-лимфоцит встречает свой антиген в кровотоке, с определенной вероятностью эта клетка аутореактивная. Однако любой наивный В-лимфоцит после встречи с антигеном утрачивает способность войти в лимфатический узел, а без контакта с дендритной клеткой, которая находится в лимфатическом узле, он погибает. Таким способом устраняются из циркуляции аутореактивные и бесполезные В-лимфоциты.
Тем не менее в нашем организме все-таки остаются аутореактивные В-лимфоциты. Это легко доказать, если определить у любого из нас наличие аутоантител, например к тиреоглобулину или тиропероксидазе, антинуклеарные антитела, аутоантитела к IgG (ревматоидный фактор) и др. Но эти аутоантитела присутствуют лишь в небольшом титре. Это связано с тем, что для эффективной продукции антител необходимы Т-хелперы, однако Т-лимфоциты также проходят селекцию, но более жесткую, чем В-лимфоциты.
Формирование TCR и селекция Т-лимфоцитов
Т-клеточный рецептор имеет некоторые отличия от В-клеточного рецептора. У TCR есть только один антигенсвязывающий участок, у BCR – их два, TCR существует только в мембраносвязанной форме, в то время как BCR может быть представлен и в секреторной форме (антитело). Механизм распознавания антигенов также отличен. BCR может распознавать интактный антиген напрямую, в то время как TCR распознает антиген, презентированный в комплексе с молекулами МНС.
Тем не менее в целом В-клеточный и Т-клеточный рецепторы имеют очень схожую структуру. Т-клеточный рецептор состоит из двух цепей, которые называются α и β и связаны между собой дисульфидными связями. Так же, как и BCR, антигенраспознающий рецептор α:β Т-клеток имеет две основные части – V-регион и C-регион. V-регион T-клеточного рецептора по своей структуре очень похож на Fab-фрагмент В-клеточного рецептора. Небольшое количество Т-клеток имеют γ:δ Т-клеточный рецептор. Функции γ:δ Т-клеток (CD3+CD4-CD8-) отличны от функций α:β Т-лимфоцитов и подробно описаны в главе, посвященной врожденному иммунитету.
α-Цепь TCR кодируется так же, как и легкая цепь BCR, кластерами генов V, J и С; β-цепь TCR – кластерами генов V, J, D и С. Механизм формирования зрелого гена Т-клеточного рецептора схож с механизмом формирования BCR (случайный выбор вариантов генов, их реанжировка и сдвиг рамки считывания). Однако в связи с большим количеством аллелей J-генов количество возможных вариантов TCR составляет 10 18 .
Селекция Т-лимфоцитов
После того как Т-клеточный рецептор сформирован, начинается селекция Т-лимфоцитов с целью удаления аутореактивных и бесполезных клонов. Селекция Т-клеток, как и В-лимфоцитов, подразделяется на центральную и периферическую.
Центральная селекция Т-лимфоцитов. Предшественники Т-лимфоцитов, как и В-лимфоцитов, образуются в костном мозге, но для завершения их развития микроокружение костного мозга не является достаточным. Созревание Т-клеток осуществляется в тимусе, что и определило их название – Т-лимфоциты (тимусзависимые лимфоциты). Предшественник Т-клеток (про-Т-лимфоцит) покидает костный мозг и мигрирует в подкапсульную зону тимуса. Про-Т-лимфоцит не имеет на своей поверхности молекул, являющихся маркерами зрелых Т-лимфоцитов – CD4, CD8, а также Т-рецепторного комплекса (ТCR–CD3), включающего в себя сигнальную молекулу CD3 и непосредственно Т-клеточный рецептор. В подкапсульной зоне тимуса под влиянием микроокружения, цитокинов и гормонов тимуса в про-Т-лимфоците начинает формироваться ген Т-клеточного рецептора.
Экспрессия TCR знаменует превращение про-Т-лимфоцита в незрелый Т-лимфоцит (пре-Т-лимфоцит) с фенотипом ТCRCD3+CD4+CD8+, т.е. клетку, которая экспрес сирует на своей поверхности комплекс ТCR–CD3 и молекулы CD4 и CD8. Созревание пре-Т-лимфоцитов происходит в процессе их продвижения из кортикальной зоны тимуса в медуллярную. Кортикальная строма представлена преимущественно эпителиальными клетками с длинными ветвистыми отростками, экспрессирующими на своей поверхности в большом количестве MHC I и II классов. Макрофагов и дендритных клеток в строме кортикального слоя немного. Мигрирующие через корковую зону пре-Т-лимфоциты движутся через густые сплетения отростков эпителиальных клеток, при этом постоянно контактируют своими TCR с молекулами МНС I и II классов. Изначально пре-Тлимфоцит экспрессирует на своей поверхности и молекулу СD4 и молекулу СD8, поэтому он может взаимодействовать как с МНС I класса, так и II класса. Считается, что окончательный фенотип лимфоцита будет зависеть от того, с какой из молекул МНС впервые связался его TCR: если с МНС II класса, то экспрессия молекул СD8 прекращается и клетка приобретает фенотип СD4+, если с молекулой МНС I класса, то Т-лимфоцит становится СD8+клеткой.
Если TCR пре-Т-лимфоцита оказался неспособен взаимодействовать с молекулами МНС I класса или МНС II класса, значит такая клетка не сможет выполнять функции лимфоцита, она погибает. Этот процесс носит название положительной селекции.
В медуллярной зоне тимуса начинается отрицательная селекция CD4+Т-лимфоцитов. Здесь преобладающим типом стромальных клеток являются дендритные клетки, в меньшем количестве встречаются специализированные медуллярные эпителиоциты, еще реже – макрофаги. На дендритных и эпителиальных клетках тимуса презентированы собственные антигены организма. Известно, что каждая клетка содержит все структурные гены и теоретически может синтезировать абсолютно любой белок нашего организма. Механизм праймирования тимических антигенпрезентирующих клеток аутоантигенами до конца неясен. Существует специальный белок – продукт гена AIRE (от англ. Autoimmunity regulator), содержащий домены, предназначенные для взаимодействия с ДНК. Этот белок может активировать в антигенпрезентирующих клетках медуллярной зоны тимуса гены различных собственных белков и индуцировать их синтез. Вследствие этого, дендритные клетки способны в комплексе с молекулами МНС I и II классов презентировать практически все собственные белки организма. Исключением являются только аутоантигены антигенпривилегированных органов. К таким органам относятся щитовидная железа, семенники, внутренние среды глаза, а также частично центральная нервная система.
Лимфоциты, продвигаясь между отростками дендритных и эпителиальных клеток, взаимодействуют своими TCR с комплексами аутоантиген–МНС. Лимфоцит, TCR которого распознал антиген, является потенциально аутореактивным. CD8+клетка в этом случае подвергается апоптозу, CD4+лимфоцит превращается в регуляторную Т-клетку (Тreg). Эти клетки наряду с молекулами CD4 экспрессируют на своей поверхности большое количество молекул CD25 и транскрипционный фактор FoxP3 (от англ. Forkhead-family Transcription Factor).
Лимфоциты, TCR которых взаимодействовали с молекулами МНС, но не распознали аутоантигены, пролиферируют в медуллярной зоне тимуса, в результате чего образуются первичные клоны СD4+ и СD8+клеток. Клон – потомство одной клетки. Из одного Т-лимфоцита, прошедшего тимическую селекцию, формируется клон размером 10–20 тыс. клеток. Ген TCR, образующийся в результате реаранжировки зародышевых генов и сдвига рамки считывания, закрепляется и больше не изменяется, и все клетки клона имеют идентичные TCR. Эти вновь образовавшиеся клетки, еще не контактировавшие с антигеном за пределом тимуса, носят название наивных Т-лимфоцитов.
Периферическая селекция Т-клеток. Дальнейшая судьба наивных Т-лимфоцитов зависит от того, найдут ли они свой антиген. Встретить свой антиген наивные Т-лимфоциты могут в периферических лимфоидных органах (лимфатических узлах, селезенке или лимфоидной ткани, ассоциированной со слизистыми), куда они, как и В-лимфоциты, попадают из кровотока благодаря экспрессии на их поверхности соответствующих молекул адгезии. Из лимфоидной ткани по выносящим лимфатическим протокам клетки попадают обратно в кровь, и все повторяется. За сутки каждый лимфоцит может пройти несколько таких циклов рециркуляции. Если за 4–7 дней TCR наивного лимфоцита не взаимодействовали с антигеном, то запустится процесс апоптоза и бесполезный лимфоцит погибнет. Если наивный Т-лимфоцит распознал антиген, он становится нулевым Т-лимфоцитом, похожим по фенотипу на наивный и отличающимся от последнего только продолжительностью жизни (нулевые клетки живут более 1 года).
В целом система периферической селекции позволяет эффективно избавляться от бесполезных лимфоцитов, но дает сбой у детей раннего возраста. Ее несостоятельность наглядно демонстрируют особенности картины периферической крови у детей первых лет жизни (возрастная динамика содержания нейтрофилов и лимфоцитов, их перекресты в лейкоцитарной формуле). Очевидно, что недавно родившийся ребенок еще не контактировал с патогенами, а значит его дендритные клетки практически не презентируют антигены, следовательно, большинство наивных Т- и В-лимфоцитов у них погибают, так и не встретив свой антиген. Гибель лимфоцитов стимулирует их продукцию. Поэтому у детей раннего возраста абсолютное количество лимфоцитов в 4–5 раз больше, чем у взрослых, но в большинстве своем это наивные лимфоциты и адаптивный иммунитет в таком возрасте работает плохо. Более подробно это описано в главе, посвященной формированию иммунной системы в процессе онтогенеза.