
ЭТАПЫ ВЗАИМОДЕЙСТВИЯ ВИРУСА С КЛЕТКОЙ-ХОЗЯИНОМ
Глава 3. Взаимодействие вируса с клеткой-хозяином
- Общие представления о цикле репликации вирусов
- Прикрепление вируса к клетке
- Проникновение вируса в клетку
- Раздевание вируса
- Стратегия репликации генома и экспрессия генов
- Сборка вирионов
- Созревание и выход вирионов из клетки
- Взаимодействие вируса с клеткой-хозяином. Типы, характеристика
Общие представления о цикле репликации вирусов
Чтобы заразить клетку, вирион должен связаться с ней, затем проникнуть сквозь клеточную поверхность и, наконец, «раздеться» до такой степени, чтобы его геном приобрел доступность для ферментов, обеспечивающих транскрипцию и репликацию генома.
Цикл репликации вирусов можно разложить на ряд стадий (рис. 3.2).
Следует подчеркнуть, что приведенное деление на стадии — чисто произвольное, используемое для удобства изложения. Причем на рисунке отражена репликация «типичного», т.е., по сути дела, несуществующего вируса. Не все представленные на схеме стадии в реальном инфекционном процессе можно различить как отдельные этапы репликации. У большинства вирусов они накладываются друг на друга во времени, а иногда даже протекают одновременно. Некоторые из стадий репликации изучены досконально, о других известно мало, а ряд стадий остается вообще пока умозрительными.

Рис. 3.2. Основные стадии репродукции вирусов
Прикрепление вируса к клетке
Прикрепление (адсорбция) вируса представляет собой специфическое связывание вирионного белка (антирецептора) с молекулой клеточного рецептора. В настоящее время известно много примеров вирусных антирецепторов. Классическим примером антирецептора является гемагглютенин вируса гриппа. Некоторые сложные вирусы (в том числе поксвирусы, герпесвирусы) используют более чем один рецептор.
Подавляющее большинство рецепторов и все антирецепторы, идентифицированные к настоящему времени, относятся по своей химической природе к гликопротеидам.
С рядом проблем на стадии проникновения в клетку сталкиваются вирусы растений. Причем, дело не только в том, что снаружи растения покрыты несколькими слоями воска и пектина. Более важным является то, что каждая клетка окружена толстой стенкой из целлюлозы. Пока не известны растительные вирусы, которые бы использовали для прикрепления к клетке какие-либо специфические клеточные рецепторы наподобие тех, что используют фаги или вирусы животных. Ясно, что вирусы растений могут попасть в клетку-хозяина только при нарушении целостности клеточной стенки. Такое нарушение стенки имеет место или при механическом повреждении клеток, или в результате воздействия на растения насекомых-переносчиков.
Вирус адсорбируется на клетке вначале обратимым образом и может быть элюирован с нее. Затем адсорбция принимает необратимый характер, что связано с изменением как вируса, так и клетки.
Следует отметить, что чувствительность клетки (т.е. ее восприимчивость к тому или иному вирусу) определяется наличием рецепторов, однако восприимчивость клеток не следует путать с пермиссивностью — способностью их обеспечивать размножение вируса. Так, клетки кур не восприимчивы к вирусу полиомиелита, поскольку у них отсутствуют рецепторы для связывания вирионов. Однако они способны продуцировать полноценные вирионы после заражения их интактной РНК, изолированной из вирусных частиц, т.е. являются полностью пермиссивными в отношении этого вируса.
Одним из хорошо изученных примеров вирус-рецепторного взаимодействия является адсорбция на клетке вируса гриппа. Белок гемагглютенин образует один из двух типов гликопротеидных шипов на поверхности вирусной частицы. Второй тип шипов формирует белок нейраминидаза. Каждый гемагглютениновый шип состоит из трех молекул, в то время как нейраминидазный шип является тетрамером. Гемагглютениновые шипы отвечают за связывание вируса с рецепторами, которые представляют собой сиаловые (N-ацетилнейраминовые) кислоты — углеводные группы, обычно входящие в состав большинства гликозилированных белков. Из-за сравнительно низкой специфичности такого взаимодействия, вирусы гриппа (кроме клеток, в которых может иметь место продуктивная инфекция) способны связываться с клетками самых разнообразных типов (в том числе с эритроцитами, вызывая их агглютинацию).
Нейраминидаза является эстеразой, которая отщепляет сиаловую кислоту от углеводной цепи. Это очень важно для вируса гриппа. Поскольку рецепторы для этого вируса широко распространены, вирус часто присоединяется к непермиссивным клеткам и даже к их обломкам. Для того чтобы десорбироваться с таких неподходящих клеток, вирус гриппа способен отделяться от рецепторов в результате отщепления нейраминовой кислоты от полисахаридной части рецепторной молекулы.
В большинстве случаев наличие (или отсутствие) рецепторов на поверхности клетки определяет тропизм вируса, т.е. тип клеток-хозяев, в которых вирус способен реплицироваться. Гораздо реже такую роль играет блокирование репликации на ее более поздних стадиях. Другими словами, самая первоначальная стадия взаимодействия между вирусом и клеткой имеет важнейшее влияние на вирусный патогенез и определяет судьбу вирусной инфекции.
Проникновение вируса в клетку
Этот процесс следует за этапом связывания вируса с рецепторами клетки и протекает сравнительно быстро. В отличие от предыдущей стадии процесс проникновения обычно требует затрат энергии. Считается, что проникновение происходит в результате одного из следующих событий:
- транслокации вируса целиком через клеточную мембрану (рис. 3.3). Такой способ вирусы используют редко, и он еще плохо изучен. Процесс опосредуется белками, находящимися в составе вирусного капсида, и специфическими мембранными рецепторами;
- виропексиса (рецепторного эндоцитоза), в результате которого вирус накапливается в цитоплазматических вакуолях (рис. 3.4). По всей вероятности, это наиболее обычный способ проникновения вирусов в клетки. Процесс эндоцитоза подобен фагоцитозу, т.е. заглатыванию чужеродных частиц клеткой. Он не требует участия каких-либо специальных вирусных белков, кроме антирецепторов. Эндоцитарные вакуоли могут перемещаться внутри клетки, перенося находящиеся в ней вирусы вплоть до ядра;
- слияния оболочки вириона с клеточной мембраной (рис. 3.5). Этот процесс происходит или непосредственно на поверхности клетки, или следует за эндоцитозом в цитоплазматической вакуоли и требует наличия в составе вирусной оболочки специфического белка слияния. Под действием этого белка происходит слияние вирусной оболочки с мембраной клетки (или вакуоли), в результате чего вирусная оболочка и встроенные в нее белки становятся частью клеточной мембраны (или мембраны вакуоли), а капсид, содержащий генетический материал, проникает в цитоплазму и вызывает инфекцию.

Рис. 3.3. Транслокация вириона через клеточную мембрану с помощью рецептора на поверхности клетки


С помощью первых двух способов в клетку проникают простые вирусы. Сложные вирусы используют варианты третьего механизма. При этом миксовирусы и герпесвирусы служат примерами вирусов, проникающих в клетки путем слияния их оболочек с плазматической мембраной клетки, т.е. минуя стадию эндоцитоза.
Особый механизм введения своего генома в клетку бактерий обнаружен у Т-четных фагов, хозяевами которых являются клетки Е. coli. В результате взаимодействия вириона с клеточными рецепторами происходит обнажение фермента — лизоцима, который до того был экранирован. Лизоцим вызывает разрушение самого прочного, внутреннего слоя клеточной стенки, состоящего из мукопептидов. На следующей стадии чехол отростка, прикрепленный к клеточной стенке, сокращается, что приводит к проколу стенки и клеточной мембраны стержнем отростка. Механизм сокращения чехла сходен с механизмом сокращения мышечного белка — актина. Сократительные белки фагов обладают АТФазной активностью и в этом отношении также напоминают мышечные белки. Чехлы отростка содержат АТФ, которая, как известно, является источником энергии при мышечном сокращении. На заключительном этапе процесса фаговая ДНК инъецируется внутрь клетки. При этом цепь ДНК перемещается из головки внутри полости отростка, наподобие тому, как жидкость выдавливается из шприца через иглу. Характерно, что выход ДНК происходит также и при контакте фагов с изолированными клеточными рецепторами. Отсюда следует, что в процессе инъекции фаговой ДНК клетка не принимает никакого участия.
Раздевание вируса
Раздевание — обобщенное наименование событий, которые происходят после проникновения вируса в клетку и завершаются полным (или частичным) разрушением вирусного капсида и появлением в цитоплазме вирусного генома в форме, способной к экспрессии. К сожалению, раздевание является стадией репликации вирусов, которая пока остается наименее изученной.
В определенном смысле удаление вирусной оболочки, которое происходит во время слияния вирусной и клеточной мембран, уже можно рассматривать как часть процесса раздевания. Слияние вирусной оболочки и эндосомаль- ной мембраны контролируется вирусными белками слияния. Они обычно активируются под действием низких уровней pH внутри эндосомы. Следует отметить, что эндоцитоз таит для вирусов определенную опасность, поскольку, если вирус задерживается в эндосоме надолго, то необратимо повреждается лизосомальными ферментами.
Чем заканчивается стадия раздевания — зависит от вида вируса. В случае адено- и герпесвирусов клеточные ферменты разрушают капсид до ДНК или комплекса ДНК с основным (нуклеокапсидным) белком. У реовирусов удаляется только часть капсида, что не мешает, однако, вирусному геному экспрессировать все свои функции. Поксвирусы раздеваются в две стадии: вначале ферменты клетки-хозяина удаляют наружное покрытие, а на второй стадии для окончательного освобождения вирусной ДНК требуется участие уже вновь синтезированных вирусных ферментов.
Стратегия репликации генома и экспрессия генов
Общие сведения. Важной особенностью вирусов, отличающей их от других организмов, является то, что компоненты вируса синтезируются в клетке раздельно, а затем соединяются в зрелую вирусную частицу. Такой способ размножения носит название дизъюнктивного.
Ключевым моментом в репликации вирусов является использование для синтеза вирусных белков клеточной белоксинтезирующей системы. При этом основная трудность состоит в том, что в клетке — ни в ядре, ни в цитоплазме нет ферментов, необходимых для синтеза мРНК на вирусных РНК (т.е. нет ферментов, обеспечивающих транскрипцию вирусных РНК-геномов). Кроме того, в цитоплазме нет ферментов, способных транскрибировать вирусную ДНК. В связи с этим клеточную транскриптазу для синтеза вирусных мРНК могут использовать только ДНК-содержащие вирусы, способные проникать в ядро. Все остальные вирусы вынуждены создавать собственные ферменты для синтеза мРНК. Еще одна сложность заключается в том, что белоксинтезирующий аппарат эукариот способен транслировать только моноцистронные мРНК (он не распознает участки инициации внутри молекул мРНК). Как результат, вирусы вынуждены синтезировать либо индивидуальные мРНК для каждого гена (моноцистронные мРНК), либо мРНК, кодирующие большой полипротеин, который затем расщепляется на отдельные белки.
Стратегия любого вируса после проникновения в клетку направлена на синтез собственных белков (транскрипция и трансляция) и дочерних вирусных геномов (репликация). Способ решения этих задач зависит от природы вирусного генетического аппарата. В этом отношении все вирусы разделяют на семь групп (рис. 3.6-3.12).
Группа I (двухцепочечная ДНК). Группу составляют вирусы, инфицирующие: бактерии (например, Podoviridae, фаги Е. coli); высших животных (Pox-, Herpes-, Adeno-, Papovaviridae); насекомых (Baculo-, Irido- и Polydnaviridae); эукариотические водоросли (Phycodnaviridae); грибы.
Эти вирусы обладают: кольцевыми геномами (Papova-, Baculo- и Polydnaviridae); линейными геномами (Adeno- и Herpesviridae, некоторые фаги); циркулярно пермути- рованными линейными геномами (фаги Т4, некоторые представители сем. Iridoviridae); линейными геномами с ковалентно замкнутыми концами (Рол:- и Phycodnaviridae).
Все вирусы, кроме входящих в сем. Polydnaviridae, имеют однокомпонентные геномы; у представителей последнего семейства геном фрагментирован. Репликация геномов во всех случаях полуконсервативна.
Вирусы эукариот размножаются исключительно в ядре, используя клеточные ферменты (рис. 3.6).
Однако репликация поксвирусов, некоторых бакулови- русов и иридовирусов происходит в вирусоспецифических «тельцах включения» в цитоплазме. Эти вирусы имеют все необходимые факторы для репликации и транскрипции и поэтому почти не зависят от клеточных ферментов.

Транскрипция вирусного генома носит каскадный характер, т.е. происходит в несколько последовательных раундов с образованием сверхранних, ранних и поздних белков.
Группа II (одноцепочечная ДНК). Эта группа включает вирусы, инфицирующие: бактерии (фаги сем. Inoviridae и Microviridae); млекопитающих (Circoviridae, Parvoviridae); птиц (цирковирусоподобные организмы); растения (Gemini- viridae, Nanoviridae).
Вирусы обладают: линейным однокомпонентным геномом (Parvoviridae); кольцевым однокомпонентным геномом (Microvirida, Inoviridae Circoviridae, некоторые представители сем. Geminiviridae); кольцевым двухкомпонентным геномом (некоторые представители сем. Geminiviridae); кольцевым многокомпонентным (>3) геномом (Nanoviridae).
Репликация всех этих вирусов протекает (рис. 3.7) в ядре через образование репликативной формы — репликативного интермедиата, представляющего собой двухцепочечную ДНК, которая образуется вскоре после начала инфекции при участии (почти всегда) клеточных ДНК- полимераз.

Группа III (двухцепочечная РНК). Группа объединяет вирусы, инфицирующие: бактерии (Cystoviridae); животных, растения, насекомых (Reoviridae, Partitiviridae); позвоночных и беспозвоночных (Birnaviridae); грибы (Partitiviridae, Totiviridae).
Вирусы обладают геномами: однокомпонентным
(Totiviridae); двухкомпонентным (Birna-, Cripto- и Partitiviridae); трехкомпонентным (Cystoviridae); многокомпонентным (10-12 сегментов) (Reoviridae).
Таким образом, большинство вирусов этой группы имеет сегментированный геном. Все фрагменты генома находятся в составе одной вирусной частицы.
Геномы вирусов этой группы реплицируются (рис. 3.8) в цитоплазме клетки-хозяина по консервативному механизму с помощью вирионной РНК-зависимой РНК-полимеразы. При этом двухцепочечная РНК транскрибируется в моноцистронные мРНК, которые выполняют две функции:
- транслируются, обеспечивая синтез вирусных белков;
- служат матрицами для синтеза комплементарных дочерних цепей, что ведет к образованию двухцепочечных сегментов генома.

Группа IV (одноцепочечная (+)РНК). Эта группа включает вирусы, инфицирующие: эубактерии (Leviviridae); вирусы насекомых (Noda- и Tetraviridae); грибов (Barnaviridae); растений (Вгото-, Сото-, Poty-, Sequi- и Tombusviridae); позвоночных (Asfro-, Calici-, Corona-, Flavi-, Picorna- и Togaviridae).
Вирусы обладают разнообразными видами геномов. Однокомпонентные геномы свойственны представителям сем. Poty-, Picorna-, Sequi-, Calici-, Toga-, Tombusviridae. Двухкомпонентные геномы найдены у вирусов сем. Сото-, Noda-, Tetra- и Potyviridae. Трехкомпонентные геномы обнаружены у представителей сем. Bromoviridae.
Эти вирусы размножаются в цитоплазме и у них имеется несколько вариантов экспрессии генома. В качестве основного варианта рассмотрим репликацию пикорнавирусов (рис. 3.9). Их геномные РНК выполняют две функции. Во-первых, они функционируют как мРНК — после проникновения в клетку связываются с рибосомами и целиком транслируются, образуя полипротеин. Затем полипротеин с помощью специфических клеточных и вирусных протеаз расщепляется на функциональные белки. Во- вторых, геномная РНК выполняет функцию матрицы для синтеза на ней комплементарной (-)РНК при участии РНК-полимеразы, появляющейся в клетке в результате расщепления полипротеина. При этом образуется репликативный интермедиат, формирующий молекулы дочерних (+)РНК, которые могут, в свою очередь, использоваться в качестве мРНК или включаться в состав вирионов.
У тогавирусов реализуется иной вариант стратегии. Сначала транслируется (в виде полипротеина) часть генома, кодирующая синтез неструктурных белков (РНК-полимераз- ный комплекс), затем синтезируется (-)РНК с образованием репликативного интермедиата. Информация для синтеза структурных белков считывается уже с дочерних (+)це- пей РНК. При этом белки синтезируются в виде полипротеинов с последующим протеолитическим нарезанием.
Итак, главным в репликации вирусов с позитивным геномом является то, что геномная РНК способна служить в клетке в качестве мРНК. Таким образом, вирус имеет возможность сразу же после заражения клетки синтезировать белки, ответственные за репликацию своего генома, и нет необходимости в их внесении в клетку вместе с вирионом. Вот почему «голая» РНК, изолированная из вирионов, инфекционна. Вторая особенность таких вирусов состоит в том, что первичными продуктами трансляции РНК являются нефункциональные полипротеины, которые, подвергаясь специфическому протеолизу, распадаются на функциональные белки.

Группа V (одноцепочечная (-)РНК). Вирусы этой группы инфицируют: позвоночных (сем. Arena-, Orthomyxo- и Р агату xoviridae); позвоночных и членистоногих (Випуа- и Rhabdoviridae); растения и членистоногих (Випуа- и Rhabdoviridae).
В вирионах представителей сем. Filo-, Рагатухо-, Rhabdoviridae найдены односегментные геномы. Фрагментированные геномы обнаружены у вирусов сем. Випуа- и Ort homy xoviridae.
Вирусы этой группы считаются эволюционно молодыми, так как встречаются только у членистоногих и позвоночных. Свойство инфицировать растения возникло на сравнительно позднем этапе эволюции как результат тесных взаимоотношений насекомых с их растениями-хозяевами.
Для вирусов с геномной одноцепочечной негативной РНК (рис. 3.10) характерно то, что геномная РНК выполняет две матричные функции.
Во-первых, она используется для транскрипции и, во- вторых, для репликации. В связи с тем что для синтеза мРНК должна транскрибироваться вирусная РНК, а в клетке-хозяине соответствующего фермента нет, все вирусы с негативным геномом содержат в вирионе собственную РНК-зависимую РНК-полимеразу — транскриптазу.
Первым событием после проникновения вируса в клетку является транскрипция в цитоплазме вирусного генома, в результате чего накапливаются моноцистронные мРНК, каждая из которых кодирует один белок. Новосин- тезированные вирусные белки, в свою очередь, начинают репликацию. Они катализируют образование полноразмерной (+)РНК, служащей матрицей для синтеза на ней геномной (-)РНК потомства
Итак, главное в репликации вирусов с негативной геномной РНК заключается в том, что она функцинирует как матрица и для транскрипции, и для репликации. Отсюда следует, что:
- вирус должен вносить в клетку при заражении транскриптазу;
- «голая» РНК, изолированная из вирионов, неинфекционна;
- синтезируемые мРНК имеют длину одного гена, т.е. они кодируют один белок.

Группа VI (одноцепочечная (+)РНК, имеющая в репликативном цикле ДНК в качестве интермедиата). Вирусы этой группы инфицируют только позвоночных и представлены единственным сем. Retroviridae. Важнейшие представители: мышиный вирус рака молочной железы, вирус лейкоза мышей (вирус Молони), вирус лейкоза обезьян, Т-лимфотропный вирус человека.
Геном вирусов — монолитный. Его уникальность среди вирусов заключается в том, что он диплоидный (представлен димерной одноцепочечной РНК).
Единственная известная функция геномной РНК — матричная функция для синтеза ДНК. Поскольку клетки-хозяева не имеют для этого соответствующего фермента, вирус кроме генома содержит еще и РНК-зависимую ДНК-полимеразу — обратную транскриптазу, а также смесь тРНК хозяина, которые при синтезе ДНК служат в качестве затравки. Следует отметить, что в русскоязычной литературе принят для обратной транскриптазы также термин «ревертаза».
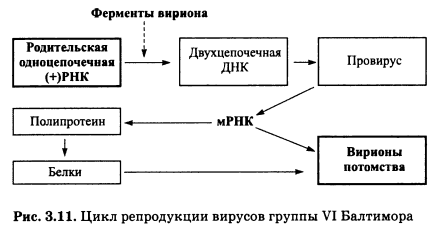
В цикле репродукции вирусов (рис. 3.11) можно выделить ряд основных стадий.
- Синтез в цитоплазме ДНК-копии, комплементарной по отношению к РНК. Эта стадия завершается образованием кольцевой одноцепочечной молекулы ДНК, связанной водородными связями с линейной геномной РНК.
- Расщепление геномной РНК нуклеазой, атакующей только РНК в составе гибридов ДНК/РНК (РНКазой-Н, также содержащейся в вирионе).
- Синтез комплементарной копии вирусной ДНК. Эта стадия осуществляется при участии вирионной ДНК-за- висимой ДНК-полимеразы.
- Перемещение кольцевой двухцепочечной вирусной ДНК из цитоплазмы в ядро, где она (благодаря действию вирионной интегразы) интегрирует в геном клетки-хозяина.
- После интеграции в геном хозяина вирусная ДНК (провирус) попадает под контроль клетки и транскрибируется транскриптазой клетки-хозяина точно так же, как другие клеточные гены. Продуктом транскрипции является молекула мРНК, равная по длине геномной РНК. Эта РНК транслируется для синтеза (через стадию образования и протеолиза полипротеинов) структурных белков и ферментов, а также используется в качестве геномов дочерних популяций.
- Самосборка вирусных нуклеопротеидов происходит в цитоплазме, а созревание вирусных частиц происходит на клеточной оболочке, откуда они отделяются почкованием. При этом нуклеопротеид обволакивается клеточной мембраной, содержащей предварительно встроенные туда вирусные белки.
В дополнение к описанной выше стратегии размножения ретровирусов следует отметить два важных обстоятельства. Прежде всего, все ферментативные активности, фигурирующие в описании репликативного цикла, начиная с обратной транскрипции геномной РНК и включая интеграцию вирусной ДНК в геном клетки-хозяина, являются проявлением единого, трудноразделимого вирусоспецифического интегразного комплекса, который присутствует в каждом вирионе и вводится в клетку вместе с вирусным геномом. И далее, экспрессия вирусных генов в составе провируса не обязательна. В течение долгого времени провирус может ничем себя не проявлять и передаваться «вертикальным» образом потомкам клетки-хозяина.
Группа VII (двухцепочечная ДНК, имеющая в репликативном цикле РНК в качестве интермедиата). Этот класс вирусов включает сложные вирусы, содержащие в составе вириона кольцевые двухцепочечные ДНК (обычно с брешью или разрывами цепи), которые реплицируются с образованием одноцепочечных РНК-интермедиатов.
Эти вирусы инфицируют: позвоночных (сем. Hepadna- viridae) и растения (роды Caulimoviruses и Badnaviruses).
Геномы вирусов представлены: частично двухцепочечной незамкнутой ковалентно кольцевой ДНК (Hepadnaviridae); кольцевой двухцепочечной ДНК с разрывами в обеих цепях (Caulimoviruses и Badnaviruses).
Все эти вирусы, по-видимому, эволюционно произошли от того же предка, что и вирусы сем. Retroviridae. По этой причине некоторые исследователи предлагают все вирусы группы VII объединить в сем. Pararetroviridae.
Экспрессия геномов этих вирусов сложна и сравнительно слабо изучена. Гепаднавирусы имеют несколько перекрывающихся рамок считывания, что позволяет кодировать большой объем информации, используя относительно компактный геном.
После этапа раздевания ДНК и вирионная полимераза мигрируют в ядро клетки-хозяина, где ДНК (рис. 3.12) достраивается с помощью ДНК-полимеразы и превращается в сверхспирализованную молекулу. Эта молекула транскрибируется с образованием молекул (+)РНК двух типов — небольших мРНК, кодирующих белки, и полноразмерной геномной РНК, которую затем транскрибирует обратная транскриптаза, синтезируя геномную ДНК.

Репликация генома включает ряд последовательных процессов. Сначала прегеномная (+)РНК инкапсулируется в сердцевину вириона, содержащую полимеразу, где фермент, действуя как обратная транскриптаза, синтезирует (-)ДНК. Затем эта цепь ДНК используется как матрица для синтеза (+)цепи ДНК, однако процесс носит незавершенный характер и заканчивается образованием двухцепочечной молекулы ДНК с неполной (+)цепью.
Одновременно с реализацией сложного репликативного цикла вирусная ДНК может интегрироваться в геном клетки. Этот процесс не обязателен, но если он имеет место, то ДНК вируса расщепляется на много фрагментов и встраивается в различные участки клеточной ДНК. При этом доступными для транскрипции оказываются лишь некоторые фрагменты вирусной ДНК.
Следует отметить, что достройка неполной цепи вирион- ной ДНК, синтез прегеномной РНК, обратная транскрипция этой РНК, разрушение РНК-матрицы и синтез неполной второй цепи вирусной ДНК — все эти процессы осуществляются единым вирусным полимеразным комплексом.
Таким образом, несмотря на некоторое сходство процессов обратной транскрипции у гепаднавирусов и ретро- вирусов, их не объединяют в одно семейство, поскольку у ретровирусов репликативным интермедиатом является не РНК, а ДНК. Кроме того, у ретровирусов в ДНК клетки- хозяина интегрирует целый геном, а у гепаднавирусов — его фрагменты. При этом у ретровирусов экспрессируется весь провирусный геном, а у гепаднавирусов — только некоторые его области. К тому же интеграция ДНК у последних вообще не обязательна.
Экспрессия генов. Сегментированные вирусные геномы обычно транскрибируются с образованием моноцистронных мРНК. Преимущество таких мРНК заключается в том, что разные белки могут синтезироваться в различных количествах.
При экспрессии несегментированных геномов существует тенденция к продукции полицистронных мРНК. Эти мРНК транслируются с образованием полипротеинов, которые затем расщепляются на зрелые (функционально активные) белковые продукты.
Для того чтобы использовать клеточную машинерию, вирусные мРНК на уровне первичной, вторичной или третичной структур должны нести определенные информационные сигналы, которые распознаются клеткой (например, сайты связывания рибосом, полиаденилатные последовательности и т.д.). Сходным образом некоторые ДНК-» содержащие вирусы (например, паповавирусы) кодируют белки, которые связываются с участком «ориджин» для репликации и стимулируют клеточную ДНК-полимеразу реплицировать именно вирусный геном.
Известны вирусы (аденовирусы, например), которые кодируют свои собственные ДНК-полимеразы, но остаются зависимыми от некоторых клеточных факторов, необходимых для репликации.
Сложные вирусы, например герпесвирусы, кодируют большое число белков, вовлекаемых в процесс синтеза ДНК, и почти не зависят от клеточной машинерии.
Сборка вирионов
Под сборкой понимают концентрирование всех компонентов, необходимых для формирования зрелого вириона в определенном месте клетки. Во время этого процесса формируются основные структуры вируса. Место сборки варьирует у разных вирусов. Например, пикорна-, покс- и реовирусы собираются в цитоплазме, адено-, папова- и парвовирусы — в ядре. Место сборки ретровирусов — на внутренней поверхности клеточной мембраны.
Несмотря на усиленное изучение этой стадии вирусного репликативного цикла, не понятно еще, как осуществляется регуляция этого процесса. Считается, что увеличение внутриклеточного уровня вирусных белков и нуклеиновых кислот до какого-то критического уровнят включает процесс сборки. Многие вирусы достигают высоких концентраций вновь синтезированных структурных компонентов путем концентрирования их в особых внутриклеточных компартментах, видимых в световой микроскоп, которые называют «тельцами включения». Появление таких телец — обычное явление на поздних стадиях инфекции многих вирусов. Размеры и локализация таких телец часто являются весьма характерным признаком некоторых вирусов. Например, инфекция вирусом бешенства приводит к появлению больших внутриядерных «телец Негри», которые впервые наблюдал Адельчи Негри в 1903 г.
Формирование вирусных частиц может быть относительно простым процессом, в котором участвуют только субъединицы капсида и нуклеиновые кислоты и который контролируется только законами симметрии. В других случаях, сборка представляет собой весьма сложный многостадийный процесс, в котором участвуют не только структурные белки, но и особые вирусоспецифические белки, служащие матрицами для сборки вирусов. Формирование нуклеокапсида может происходить на ранних стадиях сборки капсида (например, многие вирусы со спиральной симметрией «собираются» на геноме) или на поздних стадиях, когда геном комплексируется с уже почти готовым капсидом.
Некоторые вирусы синтезируют морфогенетические факторы, не являющиеся структурной частью вируса, но присутствие которых требуется для нормальной сборки. Эти факторы называют молекулярными шаперонами. Следует отметить, что иногда в процессах сборки вирусов принимают участие и шапероны клетки.
Созревание и выход вирионов из клетки
На этой стадии жизненного цикла вирус приобретает инфекционность. Она обычно сопровождается структурными изменениями частицы в результате специфического расщепления определенных полипротеинов — предшественников зрелых структурных белков. Для одних вирусов сборка и созревание неразделимы, в то время как для других созревание может происходить после того, как вирусная частица покинула клетку.
Для вирулентных вирусов (в основном простые вирусы) выход из клетки является сравнительно простым процессом: клетка разрушается, освобождая при этом вирус.
Сложные вирусы при выходе из клетки путем отпочковывания приобретают липидную оболочку. Такой способ выхода вируса из клетки не всегда приводит к ее гибели.